光伏电站对戈壁土壤细菌群落多样性及功能的影响
曹毅博 , 1 , 霍应聪 2 , 何昱璇 3 , 张金豫 2 , 李青 3 , 马瑞 , 1 , 肖建华 4 , 东双娟 1
1.甘肃农业大学 林学院,甘肃 兰州 730070
2.华电甘肃能源有限公司,甘肃 兰州 730300
3.中国电建集团北京勘测设计研究院有限公司,北京 100024
4.中国科学院西北生态环境资源研究院,甘肃 兰州 730000
Effects of photovoltaic power stations on the diversity and function of soil bacterial communities in the gobi desert
Cao Yibo , 1 , Huo Yingcong 2 , He Yuxuan 3 , Zhang Jinyu 2 , Li Qing 3 , Ma Rui , 1 , Xiao Jianhua 4 , Dong Shuangjuan 1
1.College of Forestry,Gansu Agricultural University,Lanzhou 730070,China
2.CHD Gansu Energy Co. ,Ltd,Lanzhou 730300,China
3.PowerChina Beijing Engineering Corporation Limited,Beijing 100024,China
4.Northwest Institute of Eco-Environment and Resources,Chinese Academy of Sciences,Lanzhou 730000,China
通讯作者: 马瑞(E-mail: mar@gasu.edu.cn )
收稿日期: 2025-11-27
修回日期: 2026-01-21
基金资助:
中国华电有限公司重点科技项目 . CHDKJ23-04-01-61
Received: 2025-11-27
Revised: 2026-01-21
作者简介 About authors
曹毅博(2001—),男,甘肃武威人,硕士研究生,主要从事荒漠生态研究E-mail:838136874@qq.com
, E-mail:838136874@qq.com
摘要
为探究光伏电站对戈壁土壤细菌群落多样性及功能的影响,以甘肃省民乐县三墩滩百万千瓦光伏发电基地为对象,在光伏阵列中心区选取无扰动光伏板,采集板檐(FP)、板下(UP)、板间(IP)0~20 cm土样,并以电站外围土壤为对照(CK),系统分析土壤理化性质、细菌群落结构及功能特征。结果表明:所采土样共检测到细菌35门、107纲、240目、358科、541属,群落中优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,占总细菌相对丰度的80.95%以上。主坐标分析(PCoA)显示FP、UP、IP处细菌群落结构与CK存在显著差异,FP处细菌丰富度(Chao1指数)和多样性(Shannon指数)最高,UP和IP处则显著低于CK(P >0.05)。Mantel检验揭示,土壤电导率、有机碳、全氮和容重是影响戈壁土壤细菌群落结构的关键环境因子。功能预测表明,土壤细菌以新陈代谢功能为主导,在17个二级功能中,FP处在脂质代谢和外源生物降解方面功能较强,UP处在辅因子与维生素代谢及蛋白质合成方面表现突出。综上,光伏电站通过改变局地土壤理化性质,显著影响戈壁土壤细菌群落结构、多样性及功能潜力,研究结果可为戈壁土壤生态修复提供理论依据。
关键词:
戈壁 光伏电站 土壤细菌 土壤理化性质
Abstract
To elucidate the impact of photovoltaic power plants on the structure and function of soil bacterial communities in the gobi desert. This study was conducted at the Sanduntan Million-Kilowatt Photovoltaic Power Base in Minle County, Gansu Province. Undisturbed panels from the central area of the photovoltaic array were selected. Soil samples (0-20 cm depth) were collected from different locations: front eave of photovoltaic panel (FP), underneath photovoltaic panel (UP), interval between photovoltaic panels (IP). Soils from OTUside the power station were used as controls (CK). A systematic analysis was then performed on soil physicochemical properties, bacterial community structure, and functional characteristics. The results indicated that a total of 35 bacterial phyla, 107 classes, 240 orders, 358 families, and 541 genera were detected in soil samples collected from both inside and OTUside the power station in the study area. The dominant phyla in the bacterial community were Actinobacteria, Proteobacteria, Acidobacteria, Chloroflexi, Gemmatimonadota, and Bacteroidota, which collectively accounted for over 80.95% of the total bacterial relative abundance. The bacterial community structures at FP, UP, and IP were distinct from that of CK, as indicated by Principal Coordinate Analysis (PCoA). Furthermore, the highest bacterial richness and diversity (assessed by Chao1 and Shannon indices, respectively) were found at FP, with UP and IP showing values significantly lower (P <0.05) than the control. Mantel tests revealed that soil electrical conductivity, organic carbon, total nitrogen, and bulk density were key environmental factors influencing the bacterial community structure in the gobi desert. Functional prediction indicates that soil bacteria are predominantly characterized by metabolic functions. Among the 17 secondary functions, FP demonstrates stronger capabilities in lipid metabolism and xenobiotic biodegradation, while UP shows prominent performance in cofactor and vitamin metabolism as well as protein synthesis. Through their modification of local soil properties, photovoltaic power stations exert a significant influence on the structure, diversity, and functional potential of bacterial communities in gobi desert soils. These results offer a theoretical basis for informing future ecological restoration strategies in this region.
Keywords:
gobi desert photovoltaic power station soil bacteria soil physicochemical properties
本文引用格式
曹毅博, 霍应聪, 何昱璇, 张金豫, 李青, 马瑞, 肖建华, 东双娟. 光伏电站对戈壁土壤细菌群落多样性及功能的影响 . 中国沙漠 [J], 2026, 46(5): 325-334 doi:10.7522/j.issn.1000-694X.2026.00007
Cao Yibo, Huo Yingcong, He Yuxuan, Zhang Jinyu, Li Qing, Ma Rui, Xiao Jianhua, Dong Shuangjuan. Effects of photovoltaic power stations on the diversity and function of soil bacterial communities in the gobi desert . Journal of Desert Research
0 引言
全球正在面临消耗石油、煤炭等传统化石能源所带来的环境污染、温室效应等问题。发展太阳能、风能、水能等可再生清洁能源已成为热点话题[1 -2 ] 。在“双碳”目标的指引下,中国正在大力推动以光伏发电为代表的清洁低碳能源发展[3 ] 。目前,太阳能光伏电场的装机数量以及规模正在逐步增长,光伏电场的建设所带来的环境影响也成为人们关注的焦点[4 ] 。
中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] 。而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] 。光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] 。光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] 。张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠。吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复。郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升。
土壤微生物是陆地生态系统运转的核心驱动者[15 ] 。它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] 。这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构。在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] 。孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度。张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度。杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低。
目前,现有研究多聚焦于光伏电站对草地、沙地、荒地等的土壤微生物影响,关于光伏电站对戈壁土壤细菌群落影响的相关研究较少,其特征趋势并不明确。基于此,本研究以民乐三墩滩百万千瓦光伏发电基地为研究对象,以场外无干扰自然区为对照,通过系统阐明光伏电站的建设对戈壁土壤细菌群落多样性和结构的影响,解析土壤理化性质变化与细菌群落特征变化间的关联,结合细菌群落功能预测,初步探讨光伏电站影响下土壤微生物介导的关键生态功能的变化趋势,以期为评估光伏电站在戈壁地区的生态恢复潜力提供理论依据。
1 材料与方法
1.1 研究区概况
研究区位于甘肃省张掖市民乐县,区域年均降水量117.1 mm,年均蒸发量2 337.6 mm,年均气温7.6 ℃,海拔2 050~2 100 m[26 ] 。本研究选取2013年建成投产的民乐三墩滩百万千瓦光伏发电基地(38°45′22.884″N,100°50′3.778″E)为研究对象,电站靠近祁连山北麓,经实验测得,该地区地表覆盖4~5 cm的砾幂(砾石含量>68%),其下土壤砂粒含量约为86%,有机质含量<0.2%,pH值为8.92~9.25,是以棕漠土为主的戈壁。2025年6月初调查发现,电站内外植被状况差异较大,电站阵列区的植被盖度约为53%,主要植物种为红砂(Reaumuria soongarica )、骆驼蓬(Peganum harmala ),少量分布白刺(Nitraria tangutorum )、沙蒿(Artemisia ordosica )、沙生针茅(Stipa glareosa );电站外围未扰动区以红砂、骆驼蓬为主,植被盖度约为7%。
1.2 土壤样品采集
在民乐三墩滩百万千瓦光伏发电基地光伏阵列中心区域选择无扰动痕迹的光伏板3块,在各光伏板的板檐(FP)、板下(UP)、板间(IP),设置采样点,以光伏电站1 km外未受干扰的原地貌土壤样品为对照(CK)。在各采样点挖取深20 cm的土壤剖面各3个,用体积100 cm3 环刀采集10 cm处的环刀样用于容重、含水量的测定,各采样点的3个0~20 cm土层用取土铲混合采集土壤样品,每份土壤样品中取约50 g土样装入无菌袋并放入液氮恒温箱中运输,后在-80 ℃环境中保存用于土壤细菌多样性测定,将剩余混合土样装入自封袋,带回实验室用于其他理化性质测定。
1.3 土壤理化性质测定及16SrDNA 提取、测序
1.3.1 土壤理化性质测定
土壤容重(BD)和土壤含水率(SWC)采用烘干称重法(105 ℃,12 h)测定。其余样品于室内风干后过1 mm筛,剔除石砾、植物根系后备用。用电位法(水土比为5∶1)测定pH值和电导率(EC),重铬酸钾外加热法测定土壤有机碳(SOC),凯氏定氮法测定土壤全氮(TN),钼锑抗比色法测定土壤全磷(TP),氢氧化钠熔融法测定土壤全钾(TK)[27 ] 。各指标设置3组重复。
1.3.2 16SrDNA 提取、测序
土壤微生物指标委托广东美格基因科技有限公司测定,使用Findrop磁珠法土壤DNA提取试剂盒进行基因组DNA抽提后,利用Thermo NanoDrop One检测DNA的纯度和浓度[28 ] 。PCR扩增以基因组DNA为模板,根据细菌16S V4区引物(515F和806R),使用带barcode的特异引物及TaKaRa Premix Taq® Version 2.0进行PCR扩增,PCR反应体系如表1 ,反应条件为:先进行94 ℃预变性5 min,再进行94 ℃变性30 s,52 ℃退火30 s,72 ℃延伸30 s循环30次,最后72 ℃延伸10 min。每个样本进行3个重复,并将同一样本的PCR产物进行混合,用1%琼脂糖凝胶电泳检测PCR产物的片段长度和浓度。按照NEBNext® Ultra™ II DNA Library Prep Kit for Illumina®标准流程进行建库操作。使用Illumina Nova 6000平台对构建的扩增子文库进行PE250测序[29 ] 。
1.4 数据处理
使用Fastp分别对原始双端的Raw Reads数据进行滑窗质量剪裁,同时利用Cutadapt去除引物,生成Clean Reads。通过Usearch将双端Clean Reads拼接,得到Raw Tags后基于Silva数据库对序列进行嵌合体检测与去除,质控后最终获得高质量的Clean Tags。采用Uparse算法(97%相似度)对Clean Tags进行OTU聚类后,移除singleton OTUs。使用Usearch以对OTU代表序列进行物种注释(置信度0.8)。经去污过滤后,得到最终的OTU丰度表[30 ] 。
基于OTU丰度表,使用Usearch进行Alpha多样性指数分析(Chao1、Shannon指数、Simpson指数);使用R软件的Vegan包配合Bray_curtis距离算法进行PCoA Beta多样性分析,并用Adonis来检验细菌群落组间相似性或差异性;运用R软件ggcor包mantel test相关性检验分析土壤理化因子与土壤主要细菌门、属的相关性[29 ] ;采用PICRUSt2功能预测软件对比KEGG数据库信息获得各个样品的KEGG Orthology相对丰度并进行功能预测。利用IBM SPSS 26软件对土壤理化性质及土壤微生物数据进行单因素方差分析,并用多重比较法(Duncan)检验显著性差异,以平均值±标准差来表示测定结果。本研究绘图由R语言5.1.3和Origin 2024完成。
2 结果分析
2.1 光伏电站对戈壁土壤理化性质的影响
光伏电站对戈壁0~20 cm土壤理化性质的影响如表2 所列。UP和IP处的BD显著高于CK(P <0.05),增幅分别为13.89%、12.96%。而FP处的SWC和IP处的EC分别高达4.44%、1841.33 μS·cm-1 ,相较CK处有显著提升(P <0.05)。电站内3处位置土壤均呈碱性,FP、IP处pH值较高,分别为8.44、8.92。
不同采样点土壤养分含量的变化趋势各异,FP处的SOC、TN、TK含量分别为1.71、0.33、4.88 g·kg-1 均显著高于CK(P <0.05);IP处的SOC、TK相较CK显著升高(P <0.05),增幅分别为25.71%、12.04%;而UP处的SOC的含量与CK处差异并不显著(P >0.05),但TN、TP、TK含量相较CK降幅分别为23.53%、30.77%、33.33%。综上,光伏阵列对FP、IP处戈壁土壤理化性质的整体提升具有显著效果。
2.2 光伏电站对戈壁土壤细菌多样性的影响
经质控抽平后,所有样本以大于97%相似性聚类共获得OTU总数为4 925个。各样品测序覆盖度≥99.22%,表明样品序列信息可以代表研究区土壤细菌群落真实概况(表3 )。不同采样点的土壤细菌α 多样性差异显著(P <0.05)。其中,FP处Chao1指数相较CK处增加了6.34%,而UP、IP处相较CK处则分别降低了12.96%、31.31%。UP处和IP处Shannon指数均显著低于CK处(P <0.05),降幅分别为4.51%、11.32%。IP处Simpson指数相较FP、UP、CK处显著升高(P <0.05),增幅分别为142.55%、103.57%、192.31%。综上,FP处土壤细菌多样性和丰富度较CK处有所提升,但UP、IP处相较CK有所下降。
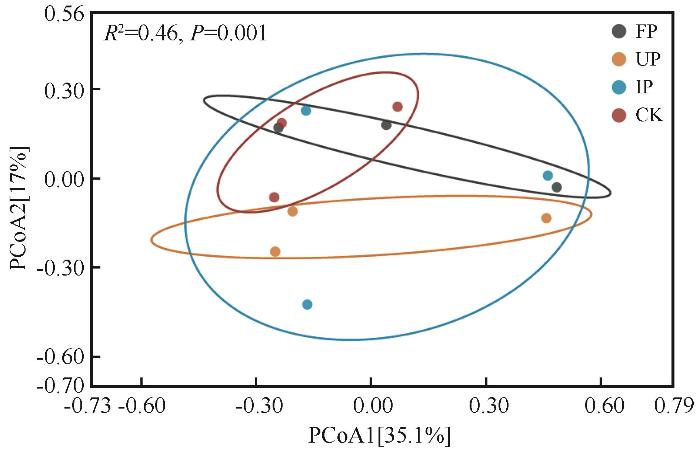
基于Bray-curtis距离算法,对戈壁光伏电站内外不同采样点土壤细菌群落进行主坐标(PCoA)Beta多样性分析(图1 )。结果表明,第一主坐标的解释度为35.1%,第二主坐标的解释度为17%,二者共解释52.1%。PCoA图显示,电站内各采样点在图中分布较为聚集,而与CK明显分离。通过Adonis检验发现,光伏阵列不同位置的土壤细菌群落结构具有显著差异(R 2 =0.46,P =0.001)。
图1
图1
土壤细菌群落PCoA分析
Fig.1
PCoA Analysis of soil bacterial community
2.3 光伏电站对戈壁土壤细菌群落结构的影响
2.3.1 土壤细菌门水平结构
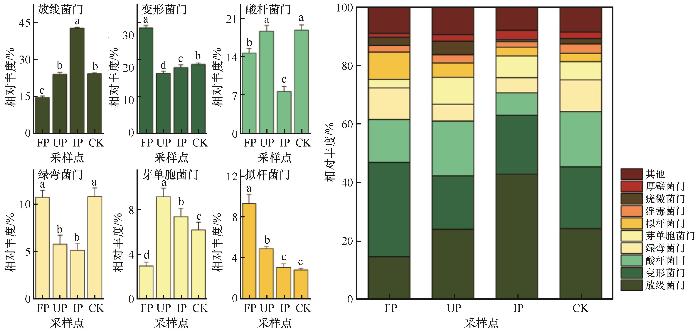
在门水平上,对不同采样点土壤细菌群落进行分析,光伏电站内外采样点土壤细菌群落组成相似,但相对丰度存在差异(图2 )。电站内外土样共检测到细菌35门、107纲、240目、358科、541属。相对丰度≥1%的土壤细菌共9门,其中优势菌门分别为放线菌门(Actinobacteriota,14.67%~42.91%)、变形菌门(Proteobacteria,18.30%~32.29%)、酸杆菌门(Acidobacteriota,7.69%~18.94%)、绿弯菌门(Chloroflexi,5.15%~10.86%)、芽单胞菌门(Gemmatimonadota,2.98%~9.20%)、拟杆菌门(Bacteroidota,2.83%~9.33%),共占总细菌相对丰度的80.95%以上。相对丰度低于1%的细菌合并为其他。
图2
图2
土壤细菌门水平群落结构
注: FP、UP、IP、CK分别指板檐、板下、板间、对照
Fig.2
Soil bacterial community structure at the phylum level
各采样点土壤中优势菌门间的相对丰度具有显著差异。FP土壤中,变形菌门、拟杆菌门分别较CK增加53.03%、229.83%(P <0.05)。UP土壤中,芽单胞菌门的相对丰度较CK显著增加47.40%(P <0.05)。IP土壤中,放线菌门的相对丰度较CK显著提高18.61%(P <0.05),而酸杆菌门及绿弯菌门相较CK则分别显著降低59.38%、52.61%(P <0.05)。综上,光伏阵列不同位置的土壤形成其独特的优势菌门结构。
2.3.2 土壤细菌属水平结构
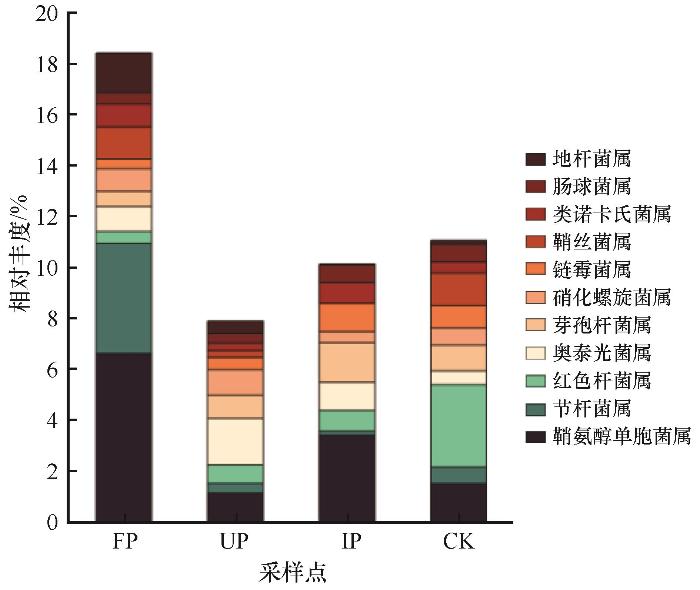
在土壤细菌属水平中,将未定义菌属(unassigned,59.51%±7.72%)和相对丰度低于0.1%的部分菌属(28.61±5.53%)除去后,获得鞘氨醇单胞菌属(Sphingomonas )、节杆菌属(Arthrobacter )、红色杆菌属(Rubrobacter )、奥泰光菌属(Ohtaekwangia )、芽孢杆菌属(Bacillus )、硝化螺旋菌属(Nitrospira )、链霉菌属(Streptomyces )、鞘丝菌属(Kouleothrix )、类诺卡氏菌属(Nocardioides )、肠球菌属(Enterococcus )、地杆菌属(Terrimonas )共11类相对丰度≥0.1%的已分类细菌属。
各采样点主要细菌属的分布存在明显差异(图3 )。在FP土壤中,鞘氨醇单胞菌属、节杆菌属、地杆菌属的相对丰度较CK分别显著增加5.11%、3.68%、1.41%(P <0.05)。UP土壤中,奥泰光菌属较CK显著增加241.24%(P <0.05)。IP土壤中,芽孢杆菌属与链霉菌属较CK分别显著增加54.87%、26.94%(P <0.05)。与CK相比,FP、UP、IP土壤中红色杆菌属的相对丰度分别显著降低2.77%、2.52%、2.43%(P <0.05)。综上,光伏阵列不同位置的土壤中均呈现出特有的优势菌属。
图3
图3
土壤细菌属水平群落结构
注: FP、UP、IP、CK分别指板檐、板下、板间、对照
Fig.3
Soil bacterial community structure at the genus level
2.4 关键细菌类群对环境因子的响应
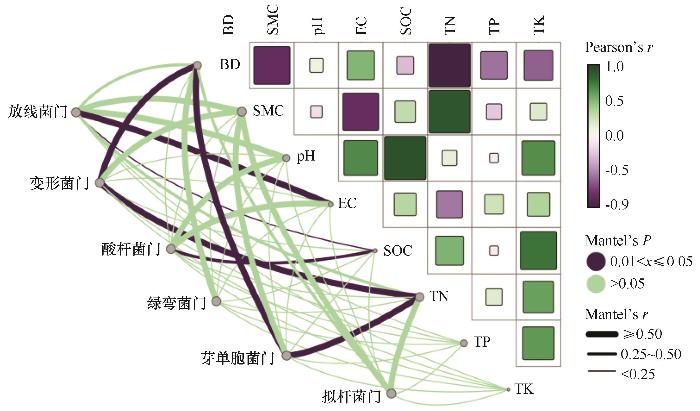
为探究土壤细菌群落变化的环境驱动因素,本研究通过Mantel检验分析了土壤中相对丰度最高的6种主要细菌门(总占比>80%)与理化因子之间的相关性(图4 )。放线菌门的相对丰度与EC和SOC均呈显著相关(r =0.68,P <0.05;r =0.16,P <0.05);变形菌门的相对丰度与BD、TN均呈显著相关(r =0.77,P <0.05;r =0.99,P <0.05);酸杆菌门的相对丰度与SOC呈显著相关(r =0.49,P <0.05);芽单胞菌门的相对丰度与TN、BD均呈显著相关(r =0.83,P <0.05;r =0.98,P <0.05)。
图4
图4
主要细菌门与土壤理化性质相关性分析
Fig.4
Correlation analysis between major bacterial phyla and soil physicochemical properties
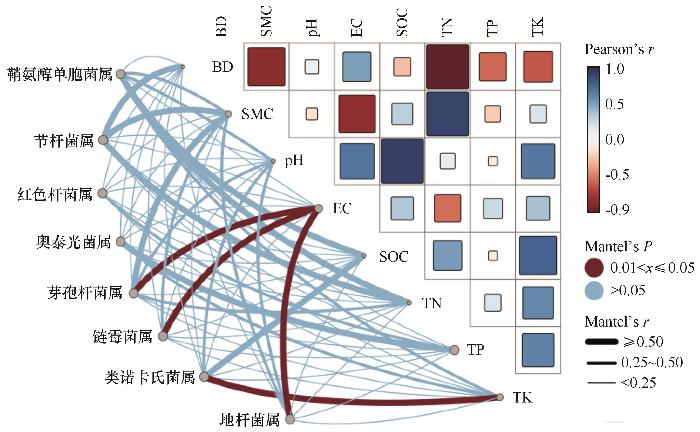
为探究在属水平上的具体响应,本研究选取在处理间差异显著(P <0.05)且相对丰度较高的8种主要细菌属与环境因子重点分析。结果表明(图5 ),EC与芽孢杆菌属、链霉菌属、地杆菌属的相对丰度均呈显著相关(r =0.75,P <0.05;r =0.75,P <0.05;r =0.90,P <0.05);TK与类诺卡氏菌属的相对丰度呈显著相关(r =0.73,P <0.05)。
图5
图5
主要细菌属与土壤理化性质相关性分析
Fig.5
Correlation analysis between major bacterial genera and soil physicochemical properties
2.5 土壤细菌功能预测
使用PICRUSt2软件通过比对16S测序数据获得的物种组成信息,获得各个样本的KEGG丰度(表4 )。在一级功能水平上,所有样品共鉴定出4类主要功能(相对丰度>1%),按相对丰度从高到低依次为:新陈代谢(79.72%~80.35%)、遗传信息处理(10.78%~11.64%)、细胞过程(3.27%~3.91%)和环境信息处理(1.50%~1.57%)。其中新陈代谢功能占据绝对主导地位,表明土壤微生物群落主要参与物质与能量的代谢过程。在二级功能水平上,共检测到17个相对丰度大于1%的功能通路。碳水化合物代谢(13.14%~13.34%)、氨基酸代谢(13.05%~13.24%)和辅因子和维生素代谢(11.72%~12.26%)为三大核心代谢功能,这反映了土壤微生物在碳氮循环和辅酶代谢中的关键作用。
通过多重比较发现不同采样点间多个功能存在显著差异。与CK相比,FP处脂质代谢、外源生物降解与代谢及膜转运功能的相对丰度分别增加了10.74%、13.30%、3.97%;UP处萜类化合物和聚酮化合物代谢、聚糖生物合成和代谢功能分别提升了1.74%、4.33%;IP处氨基酸代谢、复制和修复及细胞运动功能则分别提升了0.91%、2.82%、6.99%。
3 讨论
3.1 光伏电站不同位置的土壤理化因子
土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] 。本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性。FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致。而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性。这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象。此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] 。综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用。
3.2 光伏电站不同位置的土壤细菌群落组成
土壤微生物的群落组成可以反映土壤的稳定性与功能状态[35 ] 。本研究表明,光伏电站建设显著改变了戈壁土壤细菌群落组成与多样性。Alpha多样性分析显示,仅FP处的Chao1指数显著高于CK,表明其细菌丰富度升高;而UP和IP处的多样性和丰富度均显著降低。Beta多样性分析进一步证实,各采样点间细菌群落结构存在显著差异,说明光伏板布设引起了微生物群落重组。这一结果与王诗雯[36 ] 在松嫩草地观测到的光伏阵列整体提升细菌α-多样性的结论存在差异。由于戈壁地区气候极端干旱,土壤微生物群落对水分和微环境变化极为敏感;光伏板遮阴在UP处造成持续的低温与弱光限制了多数微生物的生长,仅在FP处因水分与养分条件同步改善,促进了多样性上升。相比之下,草地生境水分与养分胁迫相对温和,光伏板遮阴普遍缓解了高温与水分蒸发,从而更广泛地提升了细菌多样性。这体现了光伏板-土壤-微生物系统相互作用的复杂性与环境依赖性[36 -37 ] 。
戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致。FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低。已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] 。FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] 。综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能。
3.3 关键细菌类群对土壤理化性质的响应
土壤微生物群落结构与环境因子密切相关[41 ] 。Mantel检验表明,土壤理化因子与细菌群落结构显著相关。放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关。有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] 。姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关。而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门。在属水平上,特定菌属的分布亦受关键理化因子调控。EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] 。这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解。
3.4 戈壁土壤细菌功能预测
土壤细菌通过其功能活动影响生态系统过程[43 ] 。基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著。所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] 。本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱。UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低。这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] 。这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] 。综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用。该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子。
4 结论
光伏电站的建设显著改变了戈壁土壤的细菌多样性及群落结构,并主要受土壤盐分、容重、养分等关键理化因子的驱动。功能预测显示,新陈代谢为戈壁土壤细菌的主导功能,以碳水化合物代谢、氨基酸代谢和辅因子代谢为核心途径。电站内部形成明显的空间异质性微环境,导致FP、UP、IP的细菌优势菌群及代谢功能发生特异性分异。其中FP处的SWC、SOC、TN、TK、Chao1指数、Shannon指数分别为4.44%、1.71 g·kg-1 、0.33 g·kg-1 、4.88 g·kg-1 、3 273.12、9.65均为最高。因此,FP处区域更利于微生物丰富度及特定功能类群(芽孢杆菌属、鞘氨醇单胞属等)的富集。
参考文献
View Option
[1]
Thapa T S Chitralekha M Gain tuned sliding mode control based maximum power point tracking for solar PV systems
[J].IFAC PapersOnLine ,2022 ,55 (1 ):417 -422 .
[本文引用: 1]
[2]
王超 ,孙福全 科技创新支撑我国清洁能源产业发展战略研究
[J].科学学研究 ,2026 ,44 (1 ):86 -93
[本文引用: 1]
[3]
国家能源局新闻发言人 国家能源局2021年一季度网上新闻发布会文字实录
[J].中国电业 ,2021 (2 ):26 -29 .
[本文引用: 1]
[4]
袁玲雅 ,张滢 中国光伏产业发展及其资源环境影响
[J].化工学报 ,2024 ,75 (S1 ):14 -24 .
[本文引用: 1]
[5]
Gillianne B Thierry H Vanessa B Linking solar and biomass resources to generate renewable energy:can we find local complementarities in the agricultural setting
[J].Energies ,2023 ,16 (3 ):1486 .
[本文引用: 1]
[6]
何鑫东 ,李涛 ,王文玉 ,等 光伏板布设方式对土壤水热运移特征的影响
[J/OL].西安理工大学学报 ,1 -13 [2025-10-21 ].
[本文引用: 1]
[7]
刘向 ,张鹏 ,刘建全 无机肥料是青海塔拉滩光伏电站植被恢复过程中的限制性因子
[J].生物多样性 ,2022 ,30 (5 ):29 -36 .
[本文引用: 1]
[8]
柴亚凡 ,周波 ,李欣娟 ,等 戈壁荒漠区光伏发电项目水土流失特征及其影响指数
[J].中国水土保持科学 ,2014 ,12 (6 ):105 -110 .
[本文引用: 1]
[9]
Liu Y Zhang R Huang Z et al Solar photovoltaic panels significantly promote vegetation recovery by modifying the soil surface microhabitats in an arid sandy ecosystem
[J].Land Degradation & Development ,2019 ,30 (18 ):2177 -2186 .
[本文引用: 1]
[10]
崔永琴 ,冯起 ,孙家欢 ,等 西北地区光伏电站植被恢复模式研究综述
[J].水土保持通报 ,2017 ,37 (3 ):200 -203 .
[本文引用: 1]
[11]
赵延岩 ,应江 ,李振朝 ,等 戈壁光伏电站气象要素特征
[J].高原气象 ,2022 ,41 (4 ):977 -987 .
[本文引用: 2]
[12]
张芝萍 ,尚雯 ,王祺 ,等 河西走廊荒漠区光伏电站植物群落物种多样性研究
[J].西北林学院学报 ,2020 ,35 (2 ):190 -196+212 .
[本文引用: 1]
[13]
吴彤 ,段媛媛 ,李捷 ,等 不同光伏阵列建设对荒漠草地植物群落自然恢复和土壤理化性质的影响
[J].草业科学 ,2025 ,42 (9 ):2178 -2189 .
[本文引用: 2]
[14]
郝晓珍 ,于航 ,吴星叶 ,等 青藏高原荒漠区典型光伏电站建设对植被属性和土壤性质的影响
[J].生态学报 ,2025 ,45 (11 ):5510 -5526 .
[本文引用: 1]
[15]
Osburn E D Yang G Rillig M et al Evaluating the role of bacterial diversity in supporting soil ecosystem functions under anthropogenic stress
[J].ISME Communications ,2023 ,3 (1 ):66 .
[本文引用: 1]
[16]
Holanda D F S Berghahn E Vargas K L et al Plant growth promoting bacteria promote rice growth cultivated in two different sandy soils subjected distinct climates conditions
[J].World Journal of Microbiology and Biotechnology ,2024 ,40 (11 ):352 .
[本文引用: 1]
[17]
Liu X Z Huang Z Caroline A H et al Plant litter crust role in nutrients cycling potentials by bacterial communities in a sandy land ecosystem
[J].Land Degradation & Development ,2021 ,32 (11 ):3194 -3203 .
[本文引用: 1]
[18]
Lei J Cao Y Wang J et al Soil nutrients,enzyme activities,and microbial communities along a chronosequence of chinese fir plantations in subtropical China
[J].Plants ,2023 ,12 (10 ):1 -15
[本文引用: 1]
[19]
王安林 ,马瑞 ,马彦军 ,等 复合型治沙措施对土壤细菌群落结构及功能的影响
[J].草业学报 ,2024 ,33 (3 ):46 -60 .
[本文引用: 1]
[20]
徐恒康 ,付尧 ,陈超 ,等 积雪减少和氮添加对华北退化沙荒地土壤细菌群落结构多样性及网络拓扑结构的影响
[J].草地学报 ,2025 ,33 (12 ): 3874 -3884 .
[本文引用: 1]
[21]
孔维波 ,余思 ,封欣宜 ,等 水蚀风蚀交错区植被恢复对土壤生态功能的影响
[J].科学通报 ,2025 ,70 (Z2 ):4843 -4856 .
[本文引用: 1]
[22]
陆雅海 ,傅声雷 ,褚海燕 ,等 全球变化背景下的土壤生物学研究进展
[J].中国科学基金 ,2015 ,29 (1 ):19 -24 .
[本文引用: 1]
[23]
孙文倩 ,楚彬 ,叶国辉 ,等 光伏发电站对高寒草甸土壤细菌群落组成及多样性的影响研究
[J].草地学报 ,2025 ,33 (2 ):440 -450 .
[本文引用: 2]
[24]
张晴 ,牛清河 ,李毅 ,等 大型光伏电站建设对共和盆地土壤细菌群落的影响
[J].中国沙漠 ,2026 ,46 (3 ):1 -10 .
[本文引用: 2]
[25]
杨永均 ,段雪颖 ,马静 ,等 光伏建设对草原矿区复垦土壤微生物群落的影响
[J/OL].环境科学 ,1 -13 [2026-01-01 ].
[本文引用: 1]
[26]
赵丽娜 ,李昱达 ,缑倩倩 ,等 荒漠绿洲扩张区土壤微生物群落和多功能性的时效累积效应:以张掖绿洲为例
[J].干旱区研究 ,2025 ,42 (9 ):1612 -1627 .
[本文引用: 1]
[27]
鲍士旦 土壤农化分析 [M].北京 :中国农业出版社 ,2000 :25 -114 .
[本文引用: 1]
[28]
曹鹏熙 ,刘怡萱 ,许国琪 ,等 冰川棘豆(Oxytropis glacialis )根系土壤细菌多样性特征
[J].生态学报 ,2020 ,40 (14 ):4954 -4965 .
[本文引用: 1]
[29]
王安林 ,马瑞 ,马彦军 ,等 不同治沙措施对土壤细菌群落多样性及理化性质的影响
[J].草地学报 ,2023 ,31 (5 ):1359 -1367 .
[本文引用: 3]
[30]
丁新景 ,黄雅丽 ,敬如岩 ,等 基于高通量测序的黄河三角洲4种人工林土壤细菌结构及多样性研究
[J].生态学报 ,2018 ,38 (16 ):5857 -5864 .
[本文引用: 1]
[31]
屈准 ,杨肃昌 ,赵鹏 ,等 青藏高原东北缘大规模光伏电站对高寒沙地植被-土壤的影响研究:以青海共和盆地为例
[J].干旱区资源与环境 ,2024 ,38 (12 ):92 -106 .
[本文引用: 1]
[32]
鲍平安 ,季波 ,孙果 ,等 光伏电站建设对植物群落与土壤特征的影响
[J].草业学报 ,2024 ,33 (12 ):23 -33 .
[本文引用: 1]
[33]
车光欣 ,李艳梅 ,胡元泽 ,等 滇中石漠化地区光伏阵列对微气候-土壤的影响机制及效应
[J].水土保持学报 ,2025 ,39 (3 ):191 -201 .
[本文引用: 2]
[34]
何茂林 ,李瑞 ,吴盼盼 ,等 裸露岩石对喀斯特坡地水土流失及水动力特征的影响
[J].水土保持学报 ,2024 ,38 (4 ):103 -113 .
[本文引用: 1]
[35]
刘怡萱 ,曹鹏熙 ,马红梅 ,等 青藏高原土壤微生物多样性及其影响因素研究进展
[J].环境生态学 ,2019 ,1 (6 ):1 -7 .
[本文引用: 2]
[36]
王诗雯 光伏板阵列对松嫩草地土壤微生物群落组成与多样性的影响
[D].长春 :东北师范大学 ,2023 .
[本文引用: 2]
[37]
张振清 ,张昺林 ,张威 ,等 河西走廊黑戈壁生态系统中可培养细菌分布特征及抗辐射活性
[J].中国沙漠 ,2020 ,40 (4 ):52 -62 .
[本文引用: 2]
[38]
王安林 ,马瑞 ,马彦军 ,等 民勤荒漠绿洲过渡带人工梭梭林土壤细菌群落结构及功能预测
[J].环境科学 ,2024 ,45 (1 ):508 -519 .
[本文引用: 1]
[39]
吴雲鹏 ,李艳梅 ,胡元泽 ,等 不同光伏阵列处理对滇中石漠化地区环境因子及细菌群落组成和多样性的影响
[J].生态环境学报 ,2024 ,33 (10 ):1570 -1579 .
[本文引用: 1]
[40]
Yang Y Yan D Bao W et al Deciphering factors driving soil microbial life‐history strategies in restored grasslands
[J].iMeta ,2022 ,2 (1 ):e66 -e66 .
[本文引用: 1]
[41]
Crowther W T Rappuoli R Corinaldesi C et al Scientists' call to action:microbes,planetary health,and the sustainable development goals
[J].Cell ,2024 ,187 (19 ):5195 -5216 .
[本文引用: 1]
[42]
姚佳妮 ,代金霞 ,刘爽 ,等 宁夏荒漠草原典型灌丛根际土壤细菌群落结构与功能
[J].生态学报 ,2024 ,44 (20 ):9285 -9299 .
[本文引用: 1]
[43]
Ye Z C Ecoenzymatic stoichiometry reflects the regulation of microbial carbon and nitrogen limitation on soil nitrogen cycling potential in arid agriculture ecosystems
[J].Journal of Soils and Sediments ,2022 ,22 (4 ):1 -14 .
[本文引用: 1]
[44]
丁钰珮 ,杜宇佳 ,高广磊 ,等 呼伦贝尔沙地樟子松人工林土壤细菌群落结构与功能预测
[J].生态学报 ,2021 ,41 (10 ):4131 -4139 .
[本文引用: 1]
[45]
刘绍东 新疆棉花初花期土壤—根系连续体微生物群落演替及干旱胁迫响应机制
[D].乌鲁木齐 :新疆农业大学 ,2023 .
[本文引用: 1]
[46]
黄铖 ,吴林 ,李旭 ,等 持续集约化森林经营下土壤微生物多样性对土壤多功能性的影响
[J/OL].土壤学报 ,1 -13 [2025-10-21 ].
[本文引用: 1]
Gain tuned sliding mode control based maximum power point tracking for solar PV systems
1
2022
... 全球正在面临消耗石油、煤炭等传统化石能源所带来的环境污染、温室效应等问题.发展太阳能、风能、水能等可再生清洁能源已成为热点话题[1 -2 ] .在“双碳”目标的指引下,中国正在大力推动以光伏发电为代表的清洁低碳能源发展[3 ] .目前,太阳能光伏电场的装机数量以及规模正在逐步增长,光伏电场的建设所带来的环境影响也成为人们关注的焦点[4 ] . ...
科技创新支撑我国清洁能源产业发展战略研究
1
2026
... 全球正在面临消耗石油、煤炭等传统化石能源所带来的环境污染、温室效应等问题.发展太阳能、风能、水能等可再生清洁能源已成为热点话题[1 -2 ] .在“双碳”目标的指引下,中国正在大力推动以光伏发电为代表的清洁低碳能源发展[3 ] .目前,太阳能光伏电场的装机数量以及规模正在逐步增长,光伏电场的建设所带来的环境影响也成为人们关注的焦点[4 ] . ...
国家能源局2021年一季度网上新闻发布会文字实录
1
2021
... 全球正在面临消耗石油、煤炭等传统化石能源所带来的环境污染、温室效应等问题.发展太阳能、风能、水能等可再生清洁能源已成为热点话题[1 -2 ] .在“双碳”目标的指引下,中国正在大力推动以光伏发电为代表的清洁低碳能源发展[3 ] .目前,太阳能光伏电场的装机数量以及规模正在逐步增长,光伏电场的建设所带来的环境影响也成为人们关注的焦点[4 ] . ...
中国光伏产业发展及其资源环境影响
1
2024
... 全球正在面临消耗石油、煤炭等传统化石能源所带来的环境污染、温室效应等问题.发展太阳能、风能、水能等可再生清洁能源已成为热点话题[1 -2 ] .在“双碳”目标的指引下,中国正在大力推动以光伏发电为代表的清洁低碳能源发展[3 ] .目前,太阳能光伏电场的装机数量以及规模正在逐步增长,光伏电场的建设所带来的环境影响也成为人们关注的焦点[4 ] . ...
Linking solar and biomass resources to generate renewable energy:can we find local complementarities in the agricultural setting
1
2023
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
光伏板布设方式对土壤水热运移特征的影响
1
1
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
无机肥料是青海塔拉滩光伏电站植被恢复过程中的限制性因子
1
2022
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
戈壁荒漠区光伏发电项目水土流失特征及其影响指数
1
2014
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
Solar photovoltaic panels significantly promote vegetation recovery by modifying the soil surface microhabitats in an arid sandy ecosystem
1
2019
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
西北地区光伏电站植被恢复模式研究综述
1
2017
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
戈壁光伏电站气象要素特征
2
2022
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
河西走廊荒漠区光伏电站植物群落物种多样性研究
1
2020
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
不同光伏阵列建设对荒漠草地植物群落自然恢复和土壤理化性质的影响
2
2025
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
... 土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] .本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性.FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致.而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性.这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象.此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] .综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用. ...
青藏高原荒漠区典型光伏电站建设对植被属性和土壤性质的影响
1
2025
... 中国西北沙戈荒地区太阳能资源丰富,是光伏电站建设的理想地区[5 ] .而光伏电站的建设可以引起局地微气候、水热运移特征、生物多样性、土壤理化性质等方面的变化[6 -7 ] .光伏电站在施工建设时需要整平场地、修建道路、铺设电缆管道等措施,会对地表土壤结构以及自然植被产生破坏,进而造成水土流失[8 ] ;在光伏电站的运行期,光伏板会改变风沙输移特征,使光伏板前沿形成风蚀坑,在光伏板阵列间形成堆积体[9 ] .光伏阵列可以削弱近地面风速[10 ] ,改变戈壁近地层的温度[11 ] .张芝萍等[12 ] 发现,光伏电站在沙漠和戈壁均能提高植物物种数量,且戈壁的提升效果优于沙漠.吴彤等[13 ] 在荒漠草地的研究表明,土壤质量与植物群落的恢复程度均表现为光伏板间高于板下,其中平单轴跟踪阵列更有利于生态恢复.郝晓珍等[14 ] 指出,电站内植被高度、地上生物量与土壤养分含量均随建站年限增加而显著提升. ...
Evaluating the role of bacterial diversity in supporting soil ecosystem functions under anthropogenic stress
1
2023
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
Plant growth promoting bacteria promote rice growth cultivated in two different sandy soils subjected distinct climates conditions
1
2024
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
Plant litter crust role in nutrients cycling potentials by bacterial communities in a sandy land ecosystem
1
2021
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
Soil nutrients,enzyme activities,and microbial communities along a chronosequence of chinese fir plantations in subtropical China
1
2023
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
复合型治沙措施对土壤细菌群落结构及功能的影响
1
2024
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
积雪减少和氮添加对华北退化沙荒地土壤细菌群落结构多样性及网络拓扑结构的影响
1
2025
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
水蚀风蚀交错区植被恢复对土壤生态功能的影响
1
2025
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
全球变化背景下的土壤生物学研究进展
1
2015
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
光伏发电站对高寒草甸土壤细菌群落组成及多样性的影响研究
2
2025
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
... 土壤微生物群落结构与环境因子密切相关[41 ] .Mantel检验表明,土壤理化因子与细菌群落结构显著相关.放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关.有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] .姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关.而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门.在属水平上,特定菌属的分布亦受关键理化因子调控.EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] .这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解. ...
大型光伏电站建设对共和盆地土壤细菌群落的影响
2
2026
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
... 土壤微生物群落结构与环境因子密切相关[41 ] .Mantel检验表明,土壤理化因子与细菌群落结构显著相关.放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关.有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] .姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关.而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门.在属水平上,特定菌属的分布亦受关键理化因子调控.EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] .这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解. ...
光伏建设对草原矿区复垦土壤微生物群落的影响
1
1
... 土壤微生物是陆地生态系统运转的核心驱动者[15 ] .它们通过凋落物分解、有机质转化和养分循环等过程,将植被与土壤环境紧密相连[16 -17 ] ,而植被与土壤环境的变化又会反作用于土壤微生物,使其类群特征产生相应的改变[18 ] .这一互馈机制在陆地生态系统普遍存在,在沙地布设沙障和造林[19 ] 、在退化沙荒地土壤除雪与施氮[20 ] 、在水蚀风蚀交错区进行植被恢复措施[21 ] ,均在改良土壤理化性质与植被群落结构的同时,增强土壤微生物多样性,优化其群落结构.在养分匮乏、生态脆弱的戈壁地区,光伏电站的建设会改变土壤微环境[11 ] ,而土壤微生物对环境的变化较敏感,其群落特征与功能水平等也被看做土壤生态稳定性的关键指标[22 ] .孙文倩等[23 ] 发现,光伏电站提升了高寒草甸土壤中参与氮代谢功能途径细菌的相对丰度.张晴等[24 ] 指出,光伏电站建设显著增加了草地、沙地化能异养型、化能自养型细菌的相对丰度.杨永均等[25 ] 对草原矿区复垦土壤的研究表明,光伏建设区相比未铺设光伏复垦区,土壤细菌群落的丰富度和多样性降低. ...
荒漠绿洲扩张区土壤微生物群落和多功能性的时效累积效应:以张掖绿洲为例
1
2025
... 研究区位于甘肃省张掖市民乐县,区域年均降水量117.1 mm,年均蒸发量2 337.6 mm,年均气温7.6 ℃,海拔2 050~2 100 m[26 ] .本研究选取2013年建成投产的民乐三墩滩百万千瓦光伏发电基地(38°45′22.884″N,100°50′3.778″E)为研究对象,电站靠近祁连山北麓,经实验测得,该地区地表覆盖4~5 cm的砾幂(砾石含量>68%),其下土壤砂粒含量约为86%,有机质含量<0.2%,pH值为8.92~9.25,是以棕漠土为主的戈壁.2025年6月初调查发现,电站内外植被状况差异较大,电站阵列区的植被盖度约为53%,主要植物种为红砂(Reaumuria soongarica )、骆驼蓬(Peganum harmala ),少量分布白刺(Nitraria tangutorum )、沙蒿(Artemisia ordosica )、沙生针茅(Stipa glareosa );电站外围未扰动区以红砂、骆驼蓬为主,植被盖度约为7%. ...
1
2000
... 土壤容重(BD)和土壤含水率(SWC)采用烘干称重法(105 ℃,12 h)测定.其余样品于室内风干后过1 mm筛,剔除石砾、植物根系后备用.用电位法(水土比为5∶1)测定pH值和电导率(EC),重铬酸钾外加热法测定土壤有机碳(SOC),凯氏定氮法测定土壤全氮(TN),钼锑抗比色法测定土壤全磷(TP),氢氧化钠熔融法测定土壤全钾(TK)[27 ] .各指标设置3组重复. ...
冰川棘豆(Oxytropis glacialis )根系土壤细菌多样性特征
1
2020
... 土壤微生物指标委托广东美格基因科技有限公司测定,使用Findrop磁珠法土壤DNA提取试剂盒进行基因组DNA抽提后,利用Thermo NanoDrop One检测DNA的纯度和浓度[28 ] .PCR扩增以基因组DNA为模板,根据细菌16S V4区引物(515F和806R),使用带barcode的特异引物及TaKaRa Premix Taq® Version 2.0进行PCR扩增,PCR反应体系如表1 ,反应条件为:先进行94 ℃预变性5 min,再进行94 ℃变性30 s,52 ℃退火30 s,72 ℃延伸30 s循环30次,最后72 ℃延伸10 min.每个样本进行3个重复,并将同一样本的PCR产物进行混合,用1%琼脂糖凝胶电泳检测PCR产物的片段长度和浓度.按照NEBNext® Ultra™ II DNA Library Prep Kit for Illumina®标准流程进行建库操作.使用Illumina Nova 6000平台对构建的扩增子文库进行PE250测序[29 ] . ...
不同治沙措施对土壤细菌群落多样性及理化性质的影响
3
2023
... 土壤微生物指标委托广东美格基因科技有限公司测定,使用Findrop磁珠法土壤DNA提取试剂盒进行基因组DNA抽提后,利用Thermo NanoDrop One检测DNA的纯度和浓度[28 ] .PCR扩增以基因组DNA为模板,根据细菌16S V4区引物(515F和806R),使用带barcode的特异引物及TaKaRa Premix Taq® Version 2.0进行PCR扩增,PCR反应体系如表1 ,反应条件为:先进行94 ℃预变性5 min,再进行94 ℃变性30 s,52 ℃退火30 s,72 ℃延伸30 s循环30次,最后72 ℃延伸10 min.每个样本进行3个重复,并将同一样本的PCR产物进行混合,用1%琼脂糖凝胶电泳检测PCR产物的片段长度和浓度.按照NEBNext® Ultra™ II DNA Library Prep Kit for Illumina®标准流程进行建库操作.使用Illumina Nova 6000平台对构建的扩增子文库进行PE250测序[29 ] . ...
... 基于OTU丰度表,使用Usearch进行Alpha多样性指数分析(Chao1、Shannon指数、Simpson指数);使用R软件的Vegan包配合Bray_curtis距离算法进行PCoA Beta多样性分析,并用Adonis来检验细菌群落组间相似性或差异性;运用R软件ggcor包mantel test相关性检验分析土壤理化因子与土壤主要细菌门、属的相关性[29 ] ;采用PICRUSt2功能预测软件对比KEGG数据库信息获得各个样品的KEGG Orthology相对丰度并进行功能预测.利用IBM SPSS 26软件对土壤理化性质及土壤微生物数据进行单因素方差分析,并用多重比较法(Duncan)检验显著性差异,以平均值±标准差来表示测定结果.本研究绘图由R语言5.1.3和Origin 2024完成. ...
... 土壤微生物群落结构与环境因子密切相关[41 ] .Mantel检验表明,土壤理化因子与细菌群落结构显著相关.放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关.有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] .姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关.而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门.在属水平上,特定菌属的分布亦受关键理化因子调控.EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] .这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解. ...
基于高通量测序的黄河三角洲4种人工林土壤细菌结构及多样性研究
1
2018
... 使用Fastp分别对原始双端的Raw Reads数据进行滑窗质量剪裁,同时利用Cutadapt去除引物,生成Clean Reads.通过Usearch将双端Clean Reads拼接,得到Raw Tags后基于Silva数据库对序列进行嵌合体检测与去除,质控后最终获得高质量的Clean Tags.采用Uparse算法(97%相似度)对Clean Tags进行OTU聚类后,移除singleton OTUs.使用Usearch以对OTU代表序列进行物种注释(置信度0.8).经去污过滤后,得到最终的OTU丰度表[30 ] . ...
青藏高原东北缘大规模光伏电站对高寒沙地植被-土壤的影响研究:以青海共和盆地为例
1
2024
... 土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] .本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性.FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致.而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性.这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象.此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] .综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用. ...
光伏电站建设对植物群落与土壤特征的影响
1
2024
... 土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] .本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性.FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致.而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性.这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象.此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] .综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用. ...
滇中石漠化地区光伏阵列对微气候-土壤的影响机制及效应
2
2025
... 土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] .本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性.FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致.而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性.这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象.此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] .综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用. ...
... 土壤细菌通过其功能活动影响生态系统过程[43 ] .基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著.所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] .本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱.UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低.这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] .这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] .综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用.该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子. ...
裸露岩石对喀斯特坡地水土流失及水动力特征的影响
1
2024
... 土壤理化因子是揭示土壤生态系统状态、过程等方面的基础指标,更是理解有机物质与无机环境间相互作用的关键[31 ] .本研究结果表明,光伏电站的建设显著改变了戈壁地区0~20 cm土层的土壤理化性质,光伏板下不同位置的土壤理化指标呈现出明显的空间异质性.FP和IP处的SOC、TN和TK含量显著高于CK,这与鲍平安等[32 ] 在荒漠草原的研究结果一致.而UP处的BD显著升高,TN、TP和TK含量则显著降低,这与吴彤等[13 ] 观察到的板下土壤容重和含水量增加、部分养分无显著变化的结果具有可比性.这种差异主要源于光伏板对降水的再分配作用及其导致的微环境变化:FP、IP处有较多径流输入,养分相对富集;UP处因长期遮阴、蒸发减弱,水分滞留但生物活动受限,导致容重升高、养分降低的现象.此外,FP比CK处的SWC提高了3.89%,且FP和IP处的pH值显著升高与车光欣等[33 ] 在西南石漠化地区雨季观测到的pH上升趋势相似,这与水分增加促进土壤中碳酸盐溶解、释放氢氧根离子有关[34 ] .综上,光伏板布设通过改变水分和养分的空间分布,显著影响土壤理化性质,其中FP、IP处对土壤肥力具有提升作用. ...
青藏高原土壤微生物多样性及其影响因素研究进展
2
2019
... 土壤微生物的群落组成可以反映土壤的稳定性与功能状态[35 ] .本研究表明,光伏电站建设显著改变了戈壁土壤细菌群落组成与多样性.Alpha多样性分析显示,仅FP处的Chao1指数显著高于CK,表明其细菌丰富度升高;而UP和IP处的多样性和丰富度均显著降低.Beta多样性分析进一步证实,各采样点间细菌群落结构存在显著差异,说明光伏板布设引起了微生物群落重组.这一结果与王诗雯[36 ] 在松嫩草地观测到的光伏阵列整体提升细菌α-多样性的结论存在差异.由于戈壁地区气候极端干旱,土壤微生物群落对水分和微环境变化极为敏感;光伏板遮阴在UP处造成持续的低温与弱光限制了多数微生物的生长,仅在FP处因水分与养分条件同步改善,促进了多样性上升.相比之下,草地生境水分与养分胁迫相对温和,光伏板遮阴普遍缓解了高温与水分蒸发,从而更广泛地提升了细菌多样性.这体现了光伏板-土壤-微生物系统相互作用的复杂性与环境依赖性[36 -37 ] . ...
... 戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致.FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低.已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] .FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] .综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能. ...
光伏板阵列对松嫩草地土壤微生物群落组成与多样性的影响
2
2023
... 土壤微生物的群落组成可以反映土壤的稳定性与功能状态[35 ] .本研究表明,光伏电站建设显著改变了戈壁土壤细菌群落组成与多样性.Alpha多样性分析显示,仅FP处的Chao1指数显著高于CK,表明其细菌丰富度升高;而UP和IP处的多样性和丰富度均显著降低.Beta多样性分析进一步证实,各采样点间细菌群落结构存在显著差异,说明光伏板布设引起了微生物群落重组.这一结果与王诗雯[36 ] 在松嫩草地观测到的光伏阵列整体提升细菌α-多样性的结论存在差异.由于戈壁地区气候极端干旱,土壤微生物群落对水分和微环境变化极为敏感;光伏板遮阴在UP处造成持续的低温与弱光限制了多数微生物的生长,仅在FP处因水分与养分条件同步改善,促进了多样性上升.相比之下,草地生境水分与养分胁迫相对温和,光伏板遮阴普遍缓解了高温与水分蒸发,从而更广泛地提升了细菌多样性.这体现了光伏板-土壤-微生物系统相互作用的复杂性与环境依赖性[36 -37 ] . ...
... [36 -37 ]. ...
河西走廊黑戈壁生态系统中可培养细菌分布特征及抗辐射活性
2
2020
... 土壤微生物的群落组成可以反映土壤的稳定性与功能状态[35 ] .本研究表明,光伏电站建设显著改变了戈壁土壤细菌群落组成与多样性.Alpha多样性分析显示,仅FP处的Chao1指数显著高于CK,表明其细菌丰富度升高;而UP和IP处的多样性和丰富度均显著降低.Beta多样性分析进一步证实,各采样点间细菌群落结构存在显著差异,说明光伏板布设引起了微生物群落重组.这一结果与王诗雯[36 ] 在松嫩草地观测到的光伏阵列整体提升细菌α-多样性的结论存在差异.由于戈壁地区气候极端干旱,土壤微生物群落对水分和微环境变化极为敏感;光伏板遮阴在UP处造成持续的低温与弱光限制了多数微生物的生长,仅在FP处因水分与养分条件同步改善,促进了多样性上升.相比之下,草地生境水分与养分胁迫相对温和,光伏板遮阴普遍缓解了高温与水分蒸发,从而更广泛地提升了细菌多样性.这体现了光伏板-土壤-微生物系统相互作用的复杂性与环境依赖性[36 -37 ] . ...
... 戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致.FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低.已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] .FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] .综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能. ...
民勤荒漠绿洲过渡带人工梭梭林土壤细菌群落结构及功能预测
1
2024
... 戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致.FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低.已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] .FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] .综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能. ...
不同光伏阵列处理对滇中石漠化地区环境因子及细菌群落组成和多样性的影响
1
2024
... 戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致.FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低.已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] .FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] .综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能. ...
Deciphering factors driving soil microbial life‐history strategies in restored grasslands
1
2022
... 戈壁土壤的优势菌门为放线菌门、变形菌门、酸杆菌门、绿弯菌门、芽单胞菌门和拟杆菌门,其相对丰度在不同采样点间差异显著,与刘怡萱等[35 ] 、王安林等[38 ] 、吴雲鹏等[39 ] 在不同生态系统的研究结果一致.FP处变形菌门和拟杆菌门丰度较高,酸杆菌门丰度降低;IP处放线菌门显著富集,绿弯菌门和酸杆菌门丰度降低.已有研究表明,土壤恢复过程中土壤微生物群落结构会向富营养型转变,表现为变形菌和放线菌增加,酸杆菌和绿弯菌减少[40 ] .FP处较高的芽孢杆菌属和鞘氨醇单胞菌属丰度,与该位置可利用碳源增加有关,这两类菌属常参与有机质降解和污染物代谢[37 ] .综上,光伏板不同位置的微环境差异塑造了不同的细菌群落结构,进而影响土壤生态功能. ...
Scientists' call to action:microbes,planetary health,and the sustainable development goals
1
2024
... 土壤微生物群落结构与环境因子密切相关[41 ] .Mantel检验表明,土壤理化因子与细菌群落结构显著相关.放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关.有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] .姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关.而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门.在属水平上,特定菌属的分布亦受关键理化因子调控.EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] .这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解. ...
宁夏荒漠草原典型灌丛根际土壤细菌群落结构与功能
1
2024
... 土壤微生物群落结构与环境因子密切相关[41 ] .Mantel检验表明,土壤理化因子与细菌群落结构显著相关.放线菌门与EC和SOC显著相关,变形菌门、芽单胞菌门均与BD、TN显著相关.有研究表明,土壤温度、含水量、土壤有机质和全氮是影响土壤细菌多样性的主要土壤因子[23 ,29 ] .姚佳妮等[42 ] 对荒漠草原研究表明放线菌门与全氮、磷显著相关,变形菌门与pH显著相关,酸杆菌门与AP、速效钾和pH显著相关.而在戈壁生态系统中,盐分和有机质是驱动放线菌门分布的关键因子,而土壤容重和氮素含量则影响变形菌门和芽单胞菌门.在属水平上,特定菌属的分布亦受关键理化因子调控.EC与芽孢杆菌属、链霉菌属、地杆菌属均显著相关;TK与类诺卡氏菌属显著相关,进一步说明土壤电导率和钾含量是驱动特定功能菌属分布的关键因子[24 ] .这一发现深化了对环境因子如何通过筛选特定微生物类群来调控戈壁土壤生态系统功能的理解. ...
Ecoenzymatic stoichiometry reflects the regulation of microbial carbon and nitrogen limitation on soil nitrogen cycling potential in arid agriculture ecosystems
1
2022
... 土壤细菌通过其功能活动影响生态系统过程[43 ] .基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著.所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] .本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱.UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低.这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] .这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] .综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用.该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子. ...
呼伦贝尔沙地樟子松人工林土壤细菌群落结构与功能预测
1
2021
... 土壤细菌通过其功能活动影响生态系统过程[43 ] .基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著.所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] .本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱.UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低.这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] .这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] .综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用.该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子. ...
新疆棉花初花期土壤—根系连续体微生物群落演替及干旱胁迫响应机制
1
2023
... 土壤细菌通过其功能活动影响生态系统过程[43 ] .基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著.所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] .本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱.UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低.这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] .这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] .综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用.该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子. ...
持续集约化森林经营下土壤微生物多样性对土壤多功能性的影响
1
1
... 土壤细菌通过其功能活动影响生态系统过程[43 ] .基于PICRUSt2功能预测分析,戈壁土壤细菌群落的功能潜力在不同采样点差异显著.所有样本中,新陈代谢功能占据主导地位,其中碳水化合物代谢、氨基酸代谢和辅因子与维生素代谢为核心代谢途径,这与土壤微生物主要参与代谢功能的认知一致[44 ] .本研究中FP处在脂质代谢和外源生物降解与代谢途径方面显著高于其他采样点,表明该位置微生物群落对复杂有机物和外来化合物的降解能力更强,这一功能特征源于该位置实测较高的SOC、TN含量,提供了更丰富的有机底物,从而塑造了与之匹配的微生物功能谱.UP处在辅因子和维生素代谢、蛋白质折叠排序与降解以及翻译等功能上较为突出,而IP处则在细胞运动功能上显著最高,但在聚糖代谢中最低.这与各点位独特的微环境胁迫相关,UP处受光伏板遮阴影响;IP处受热岛效应主导,土壤温度和水分条件显著不同于其他位置[33 ] .这些胁迫因子影响了微生物的生存策略,导致其在核心代谢、应激响应及细胞行为等功能模块上发生适应性调整[45 ] .综上,本研究发现的细菌功能差异,直接体现了光伏阵列造成的微环境异质性对土壤微生物功能的塑造作用.该结果与前人关于微生物多样性调控土壤养分循环功能[46 ] 的机制认识相符,且进一步明确了光伏阵列的微气候与资源梯度是驱动功能分异的关键环境因子. ...



 甘公网安备 62010202000688号


