混交模式与丛枝菌根真菌接种对半干旱区灌木生长的协同效应
王佳濛 , 1 , 郝龙飞 , 1 , 刘婷岩 2 , 许吉康 3 , 张盛晰 1 , 杨海峰 , 1
1.内蒙古农业大学 林学院,内蒙古 呼和浩特 010018
2.内蒙古自治区林业科学研究院,内蒙古 呼和浩特 010010
3.内蒙古贺兰山国家级自然保护区管理局,内蒙古 阿拉善盟 750300
Synergistic effects of mixed planting patterns and arbuscular mycorrhizal fungi inoculation on the growth of shrubs in semi-arid regions
Wang Jiameng , 1 , Hao Longfei , 1 , Liu Tingyan 2 , Xu Jikang 3 , Zhang Shengxi 1 , Yang Haifeng , 1
1.College of Forestry,Inner Mongolia Agricultural University,Hohhot 010018,China
2.Inner Mongolia Autonomous Region Academy of Forestry Sciences,Hohhot 010010,China
3.Inner Mongolia Helan Mountain National Nature Reserve Administration Bureau,Alxa League 750300,Inner Mongolia,China
Received: 2025-12-16
Revised: 2026-02-09
作者简介 About authors
王佳濛(1999—),女,内蒙古阿拉善左旗人,硕士研究生,研究方向为林木菌根生物技术E-mail:1430018901@qq.com
, E-mail:1430018901@qq.com
摘要
在半干旱区生态恢复中,灌木混交与丛枝菌根真菌(AMF)接种均是提升植被重建效果的重要措施,但协同增效机制尚不明晰。为探究半干旱区灌木混交模式与AMF接种对根围微生态环境及苗木生长的交互影响,本研究以灌木铁线莲(G)、蒙古扁桃(M)和土庄绣线菊(T)为对象,设置6种混交模式(G-M-T、M-G-T、G-T-M、T-G-M、M-T-G、T-M-G)与2种AMF处理(±AMF),共12种处理组合,测定土壤微生物生物量、球囊霉素相关土壤蛋白、有效养分及苗木形态与养分指标,并采用双因素方差分析、多元线性回归与偏最小二乘路径模型进行系统分析。结果表明:(1)混交模式与AMF接种对土壤微生境具有协同增效作用,M-G-T模式中,接菌下土壤微生物生物量磷比不接菌提高79.3%,G-M-T与M-T-G模式在接菌下易提取球囊霉素相关土壤蛋白显著增加;(2)苗木根系形态表现出显著可塑性,G-M-T与M-G-T模式中,接菌下比根长与比表面积分别比不接菌提高386.8%与440.0%;(3)土壤有效磷与可溶性有机碳是驱动根系构型与苗木质量的关键因子。路径分析进一步表明,AMF作为“系统调节器”,通过改善微生物群落与微生境间接促进苗木生长。
关键词:
半干旱区 混交模式 丛枝菌根真菌 根围微生境 根系可塑性 协同效应
Abstract
In ecological restoration in semi-arid regions, both shrub mixed planting and arbuscular mycorrhizal fungi (AMF) inoculation are important measures for enhancing vegetation rehabilitation, yet their synergistic mechanisms remain unclear. To investigate the interactive effects of shrub mixed planting patterns and AMF inoculation on the rhizosphere microhabitat and seedling growth in semi-arid regions, this study selected Clematis fruticosa (G), Prunus mongolica (M), and Spiraea pubescens (T) as experimental species. Six mixed planting patterns (G-M-T, M-G-T, G-T-M, T-G-M, M-T-G, T-M-G) and two AMF treatments (±AMF) were established, resulting in 12 treatment combinations. Soil microbial biomass, glomalin-related soil protein, available nutrients, and seedling morphological and nutrient indicators were measured. Data were systematically analyzed using two-way ANOVA, multiple linear regression, and partial least squares path modeling (PLS-PM). The results demonstrated that: (1) Mixed planting patterns and AMF inoculation exhibited synergistic effects on the soil microhabitat. Under the M-G-T pattern, soil microbial biomass phosphorus increased by 79.3% with inoculation compared to no inoculation. In the G-M-T and M-T-G patterns, easily extractable glomalin-related soil protein significantly increased under inoculation. (2) The root morphology of the seedlings exhibited significant plasticity. Under the G-M-T and M-G-T patterns, the specific root length and specific surface area increased by 386.8% and 440.0% respectively with inoculation compared to no inoculation. (3) Soil available phosphorus and dissolved organic carbon were identified as key drivers of root architecture and seedling quality. Path analysis further revealed that AMF acts as a "system regulator", indirectly promoting seedling growth by improving the microbial community and microhabitat.
Keywords:
semi-arid region mixed planting pattern arbuscular mycorrhizal fungi rhizosphere microhabitat root plasticity synergistic effect
本文引用格式
王佳濛, 郝龙飞, 刘婷岩, 许吉康, 张盛晰, 杨海峰. 混交模式与丛枝菌根真菌接种对半干旱区灌木生长的协同效应 . 中国沙漠 [J], 2026, 46(5): 346-357 doi:10.7522/j.issn.1000-694X.2026.00027
Wang Jiameng, Hao Longfei, Liu Tingyan, Xu Jikang, Zhang Shengxi, Yang Haifeng. Synergistic effects of mixed planting patterns and arbuscular mycorrhizal fungi inoculation on the growth of shrubs in semi-arid regions . Journal of Desert Research
0 引言
在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战。在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力。灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] 。在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] 。科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] 。然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节。
丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] 。在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件。近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应。混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] 。因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义。
因此,本研究以内蒙古半干旱石质山区典型灌木——灌木铁线莲(Clematis fruticosa )、蒙古扁桃(Prunus mongolica )和土庄绣线菊(Spiraea pubescens )为对象,其均为耐旱、耐贫瘠的灌木,且与丛枝菌根真菌形成良好共生关系。通过设置6种栽植顺序混交模式与2种AMF接种处理,测定根围土壤微生物生物量、球囊霉素相关土壤蛋白、有效养分含量以及苗木形态与养分指标,综合运用双因素方差分析、多元线性回归与偏最小二乘路径模型,旨在揭示混交模式与AMF接种对根围微生境及苗木生长的交互作用与驱动机制。本研究拟解决科学问题是,在半干旱区灌木植被恢复中,混交模式与AMF接种如何通过调控根围土壤微生物与理化性质,进而影响苗木生长与养分积累?研究结果将为半干旱区灌木林的合理构建与生态恢复提供理论依据与技术支撑。
1 材料与方法
1.1 试验地概况
试验地位于内蒙古呼和浩特市内蒙古农业大学实验苗圃(40°48′47″N、111°43′16″E,海拔1 053 m)。研究地属于典型的温带大陆性气候。年降水量为335.2~534.6 mm[18 ] 。土壤pH为7.59,土壤有机C、碱解N和有效P含量分别为9.96 mg. g-1 、77.04 mg·kg-1 、19.75 mg·kg-1 。土壤中AMF孢子密度为每克土3.5个。
1.2 试验设计
混交模式试验设计:选取内蒙古半干旱区大青山具有代表性的灌木铁线莲(G)、蒙古扁桃(M)和土庄绣线菊(T),进行混栽试验,同时设置接菌(+AMF)和不接菌(-AMF)处理,共12种混栽组合,每种处理重复3次,共计36块试验小区(面积200 m2 )。混栽在前期已有的两种灌木共栽组合(G-M、M-G、G-T、T-G、M-T、T-M)经过2年培育形成多树种行间混交(株行距为0.8 m×0.5 m),于2021年春季进行第三种灌木的栽植。栽植方法为在试验小区原来的行内分别插入第三种灌木,使株行距为0.4 m×0.5 m,形成最终混交组合模式(G-M-T、M-G-T、G-T-M、T-G-M、M-T-G、T-M-G),本研究主要调查分析上述模式中第三年新栽植苗木根围微生境构建及苗木生长情况。
接菌试验设计:上述不同混交模式试验中,根据土壤中AMF孢子密度及前期针对灌木接菌的预实验处理,确定在每株苗木根围土壤中添加55g混合菌剂(+AMF)或经高温高压灭活的混合菌剂(-AMF)。选择自然生态系统中分布广、耐旱性强的根内根孢囊霉(Rhizophagus intraradices )和摩西斗管囊霉(Funneliformis mosseae )作为目标AMF。以紫花苜蓿(Medicago sativa )为宿主植物,在沙土(体积比3:1)混合基质中进行菌剂扩繁。最终获得的菌剂包含扩繁基质、被侵染的根段、孢子及菌丝。将两种AMF菌剂按等比例混合,作为试验接种菌剂。试验期间,田间杂草均采用人工拔除方式清除,以避免除草剂对土壤微生物群落的潜在影响。
1.3 采样方法和样品处理
土壤样品:每种混栽处理随机选取27株苗木(每个试验小区9株),2022年生长季结束,采集距灌木细根0~10 cm范围内的根围土壤。每个试验小区的土壤样品混合均匀后作为一个样本。样品置于冷藏箱运回内蒙古农业大学林学院实验中心实验室。过2 mm筛去除杂质后,将每份土壤样品分为两部分:一份新鲜土壤样品于4 ℃冷藏,用于测定微生物生物量碳氮磷 (MBC, MBN, MBP)和溶解性有机碳(DOC)含量。一份自然风干,用于测定土壤有效养分与球囊霉素相关土壤蛋白(GRSP)。
植物样品:同期测量各处理苗木(每个试验小区随机选取9株,共27株)的苗高(卷尺,精度0.1 cm)和地径(游标卡尺,精度0.01 mm)。将各试验小区的苗木整株挖出,带回实验室。样品经烘干、粉碎、过筛后,用于测定苗木生物量及全碳、全氮、全磷浓度。同时,采集反映养分吸收能力的细根(直径≤ 0.5 mm),用去离子水清洗附着杂物后,用于细根形态分析。
1.4 土壤指标测定
微生物生物量碳和氮采用氯仿熏蒸浸提法提取,利用TOC自动分析仪(Liqui TOCII, Elementar, 德国) 测定。微生物生物量磷采用氯仿熏蒸浸提法提取,利用连续流动分析仪(BRAN+LUEBBE AA3, 德国)测定。溶解性有机碳(DOC)土壤样品用K2 SO4 溶液浸提后,利用TOC自动分析仪(Liqui TOCII, Elementar, 德国)测定。有效氮(铵态氮+硝态氮)土壤样品经KCl溶液浸提后,利用连续流动分析仪(BRAN+LUEBBE AA3, 德国) 测定。有效磷土壤样品经NaHCO3 溶液浸提后,利用连续流动分析仪(BRAN+LUEBBE AA3, 德国)测定。球囊霉素相关土壤蛋白 (GRSP)用柠檬酸钠溶液浸提,使用考马斯亮蓝G-250比色测定易提取球囊霉素(EE-GRSP)和总球囊霉素(T-GRSP)。
1.5 苗木指标测定
细根形态:清洗后的细根样品使用Epson Expression 10000XL数字化扫描仪扫描,利用WinRHIZO PRO 2022根系图像分析软件分析,获取平均直径、比根长、比表面积等参数。养分含量:烘干粉碎后的植物样品,使用元素分析仪(Vario MACRO, Elementar, 德国)测定植物全碳(TC)和全氮(TN)。烘干粉碎后的植物样品经HNO3 -HCl(体积比1∶3)微波消解后,利用连续流动分析仪(AA3, Bran+Luebbe, 德国)采用钼锑抗比色法测定植物全磷(TP)。苗木综合质量指标:高径比和根冠比分别为苗高与地径之比以及苗木地下生物量与地上生物量之比,可以较好反映苗木抗性和造林成活率以及苗木根茎两部分的平衡状况。苗木质量指数:苗木总干重(g)/[(苗高cm/地径mm)+(茎干重g/根干重g)],计算多指标的苗木质量综合指数。
1.6 数据处理
使用SPSS 23.0软件进行混交模式与接菌处理的双因素方差分析,并采用LSD法进行多重比较,检验各处理间苗木根围土壤微生物特性、土壤微生境指标、苗木形态指标及养分含量的差异性。使用R语言(4.3.3)进行多元线性回归分析。采用偏最小二乘路径模型(PLS-PM)分析灌木混交模式、接菌处理、土壤微生物因子、土壤微生境因子、根系形态指标、苗木养分指标对苗木质量指标的影响路径。模型构建使用R语言(4.3.3)的plspm包,结果图使用Sigmaplot 12.5软件绘制。
2 结果与分析
2.1 混交模式和接菌处理对土壤微生态环境的影响
混交模式对土壤微生物生物量氮(MBN)和磷(MBP)具有显著影响,而接菌处理仅显著改变了MBP。此外,混交模式与接菌处理对MBN和MBP存在显著的交互效应,但二者对微生物生物量碳(MBC)均无显著影响(表1 )。
在-AMF和+AMF处理下,M-G-T模式中MBN均表现出较高的含量,分别较相应处理的G-T-M和T-G-M模式显著提高61.5%与73.8%。-AMF处理下,G-T-M模式的MBP含量最高,显著优于其他混交模式;而+AMF处理下,优势模式转变为T-G-M模式中MBP含量最高。
在T-G-M和M-G-T模式下,+AMF处理显著提高了MBP含量(分别增加27.5%和79.3%);相反,在G-M-T、G-T-M和M-T-G模式下,+AMF处理反而使MBP含量显著下降(降幅53.8%~65.7%)。
混交模式显著影响土壤易提取球囊霉素(EE-GRSP)与总球囊霉素(T-GRSP)含量。接菌处理显著提高了EE-GRSP含量,且与混交模式对T-GRSP存在显著的交互作用(表2 )。
-AMF处理下,T-G-M模式的EE-GRSP和T-GRSP含量均为最高;而+AMF处理下,转为M-G-T模式EE-GRSP和T-GRSP含量均为最高。
在G-M-T与M-T-G模式下,+AMF处理显著提升EE-GRSP含量,分别较-AMF处理增加22.9%(P <0.05)与13.2%(P <0.05)。G-M-T与G-T-M模式下,+AMF处理使T-GRSP显著上升,分别比-AMF处理提高10.8%(P <0.05)与8.6%(P <0.05)。
混交模式对根围土壤可溶性有机碳(DOC)、有效氮(AN)和有效磷(AP)含量均具有显著影响,且与接菌处理存在显著的交互作用(表3 )。
-AMF处理下,T-M-G模式的DOC含量最高;而+AMF处理后,G-M-T模式的DOC含量较T-G-M模式显著提高96.7%(P <0.05)。无论是否接菌,T-G-M模式的AN含量均为最高。-AMF处理下,T-M-G模式的AP含量最高;+AMF处理后,优势模式转变为T-G-M模式。
T-G-M模式下,+AMF处理显著降低了DOC含量(较-AMF处理下降64.7%)。T-M-G模式下,+AMF处理使AN含量显著提高(+49.4%),而+AMF处理使G-T-M模式AN含量显著降低(-31.9%)。G-M-T模式下接菌显著提高了AP含量(较-AMF处理增加30.1%)。
2.2 混交模式下接菌处理对苗木生长的影响
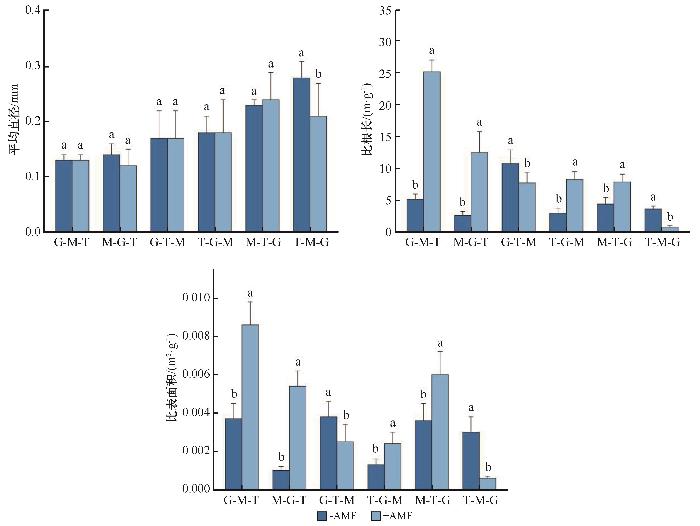
接菌处理显著改变了根系的比根长和比表面积(图1 )。仅T-M-G模式下,接菌显著降低平均直径(-33.3%)。在G-M-T、M-G-T、T-G-M和M-T-G模式下,+AMF处理显著提升比根长与比表面积,其中G-M-T模式的比根长(+386.8%)和M-G-T模式的比表面积(+440.0%)增幅最大;相反,G-T-M和T-M-G模式在+AMF后均显著下降。
图1
图1
混交模式下接菌处理对苗木细根根系形态的影响
注: 图中G、M、T分别代表灌木铁线莲、蒙古扁桃、土庄绣线菊3种灌木,其字母先后顺序代表不同的混交模式,其中前两个字母表示前期栽植组合,第三个字母表示在其基础上新栽植灌木树种。-AMF、+AMF分别代表不接菌处理和接菌处理。各处理的苗木细根根系形态数值以第三年种植的1年生苗木相关指标进行分析。不同小写字母表示相同混交模式下接菌处理间差异显著。
Fig.1
Effects of inoculation treatments under mixed planting patterns on the morphology of fine roots of seedlings
碳浓度在T-G-M模式下,+AMF处理比-AMF处理显著提高(+2.4%),而在G-M-T模式下显著降低(-4.1%)。氮浓度G-T-M模式下,+AMF处理比-AMF处理显著降低(-12.8%,表4 )。
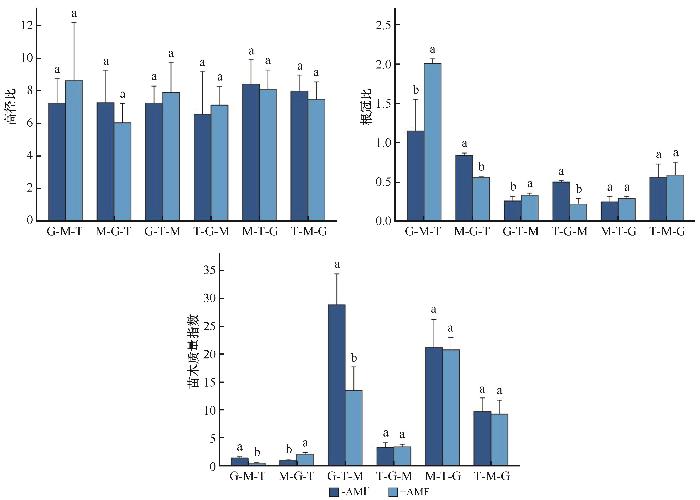
G-M-T模式下,+AMF处理显著降低苗高(-37.9%,表5 )。在G-M-T和G-T-M模式下,+AMF处理显著提升根冠比(+74.8%和+26.9%);M-G-T和T-G-M模式下,+AMF处理显著抑制根冠比(分别降低50.0%和127.3%)。在M-G-T模式下,+AMF处理显著提高苗木质量指数(+111.2%),但+AMF处理显著降低了G-M-T和G-T-M模式的苗木质量指数(降幅分别为197.9%和113.9%,图2 )。
图2
图2
混交模式下接菌处理对苗木综合质量指标的影响
注: 图中G、M、T分别代表灌木铁线莲、蒙古扁桃、土庄绣线菊3种灌木,其字母先后顺序代表不同的混交模式,其中前两个字母表示前期栽植组合,第三个字母表示在其基础上新栽植灌木树种。-AMF、+AMF分别代表不接菌处理和接菌处理。各处理的苗木细根根系形态数值以第三年种植的1年生苗木相关指标进行分析。不同小写字母表示相同混交模式下接菌处理间差异显著。
Fig.2
Effects of inoculation treatments under mixed planting patterns on the comprehensive quality indicators of seedlings
2.3 苗木根围土壤微生境与苗木生长相关因子的关联性分析
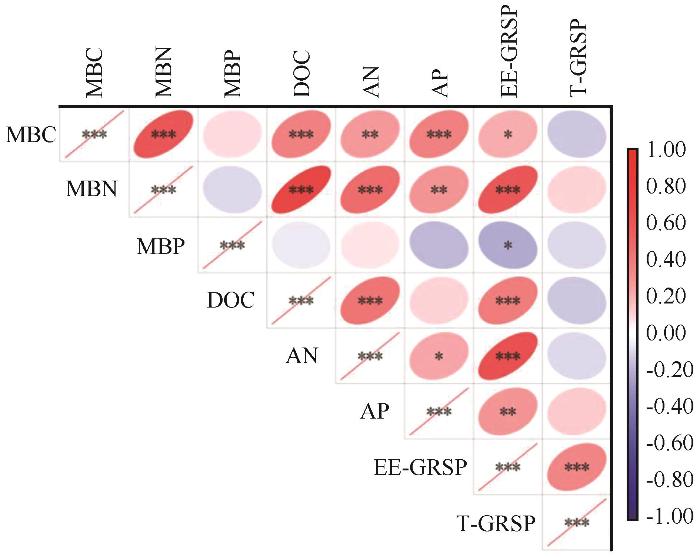
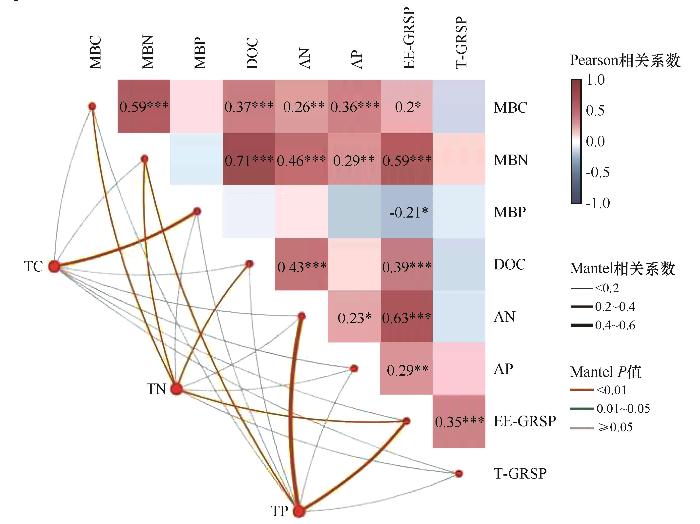
土壤有效养分和球囊霉素含量共同支撑了微生物碳氮库的积累,具体表现为MBC和MBN均与土壤DOC、AN、AP及EE-GRSP呈显著正相关,然而,MBP则与EE-GRSP呈显著负相关(图3 )。
图3
图3
苗木根围土壤微生物与土壤微生境相关因子的相关性分析
注: 图中MBC、MBN、MBP、DOC、AN、AP、EE-GRSP、T-GRSP分别代表微生物生物量碳、微生物生物量氮、微生物生物量磷、可溶性有机碳、有效氮、有效磷、易提取球囊霉素相关土壤蛋白和总球囊霉素相关土壤蛋白。
Fig.3
Correlation analysis of rhizosphere soil microorganisms and soil microhabitat related factors of seedlings
不同混交模式和接菌处理下的标准化回归分析表明(表6 ),MBN含量与平均直径和高径比显著正相关,与比根长显著负相关;MBP含量与苗高、地径和苗木质量指数极显著正相关;EE-GRSP含量与比根长和地径显著正相关;DOC含量与比根长、比表面积、根冠比和苗木质量指数显著正相关;土壤AN含量与平均直径、苗高、地径、高径比和苗木质量指数显著负相关。这说明MBP含量显著促进地上部生长和苗木质量,DOC含量可促进根系发育并优化根冠比,最终提升苗木质量。AN含量对所有被分析的苗木形态与生长指标均表现出显著的抑制作用,是最主要的限制因子。
苗木养分承载与土壤微生境相关因子的Mantel test相关性分析的结果表明:苗木碳浓度与MBP呈中等负相关;氮浓度与MBC、MBN、DOC、EE-GRSP均呈弱正相关;磷浓度与AN呈强正相关,与EE-GRSP呈中等正相关,与MBN呈弱正相关。土壤微生境因子间形成紧密的正相关网络:MBC、MBN、DOC、AN、AP与EE-GRSP两两之间多呈极显著正相关,MBP与EE-GRSP则呈显著负相关,显示了土壤碳、氮、磷有效性及球囊霉素在维持根围微环境协调中的协同作用(图4 )。
图4
图4
苗木养分承载与土壤微生境相关因子的Mantel test相关分析
注: 图中TC、TN、TP分别代表苗木碳浓度、苗木氮浓度和苗木磷浓度。
Fig.4
Mantel test correlation analysis of nutrient carrying capacity of seedlings and soil microhabitat related factors
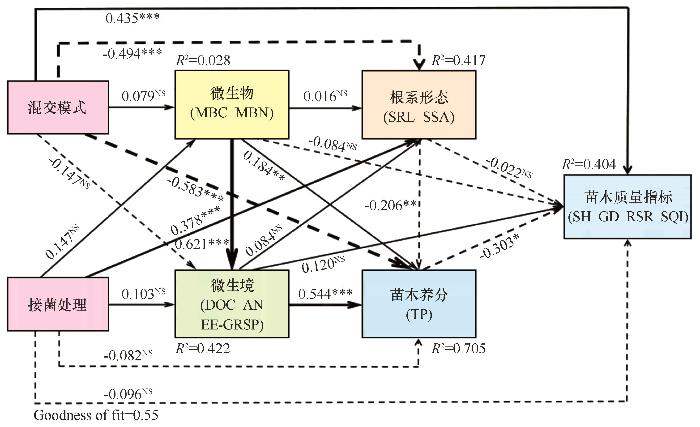
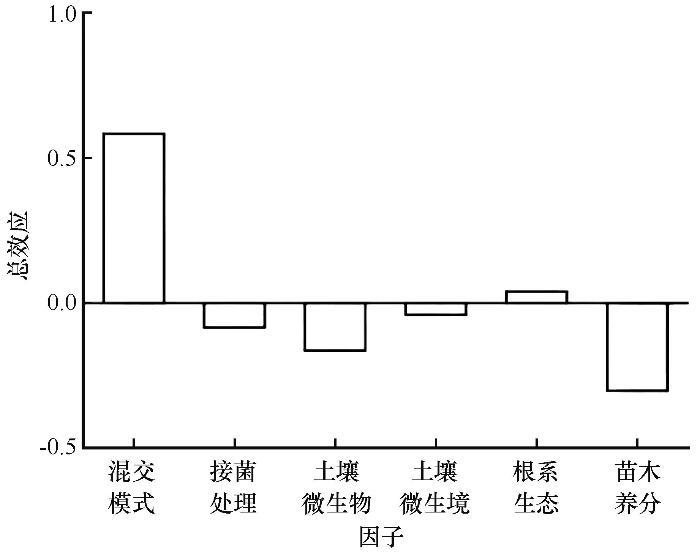
偏最小二乘路径模型(PLS-PM)分析表明,混交模式、接菌处理、土壤微生物与微生境因子、根系形态及苗木磷浓度共同调控苗木质量的路径如下(图5 ):混交模式是关键的驱动因子,直接抑制根系形态与苗木磷浓度,却直接促进苗木质量。接菌处理直接促进根系形态的改善。土壤微生物(MBC、MBN)显著提升土壤微生境质量,并直接正向影响苗木磷浓度。土壤微生境(DOC、AN、EE-GRSP)对苗木磷浓度具有强正向效应。根系形态(SRL、SSA)对苗木磷浓度表现为负向效应,而苗木磷浓度又对苗木质量呈现负向直接效应。总效应分析显示(图6 ):混交模式与根系形态对苗木质量具有正向总贡献,而接菌处理、土壤微生物、土壤微生境及苗木养分的总效应为负向。这表明,在本研究系统中,混交模式通过协调根系构建与养分分配策略,成为影响苗木综合质量的核心直接驱动力;尽管接菌与土壤微生物、微生境因子能提升磷等养分有效性,但其最终通过养分路径对苗木质量产生的间接效应仍以抑制为主。
图5
图5
基于偏最小二乘路径模型(PLS-PM)的苗木质量的驱动因子
注: PLS-PM路径图显示了混交模式、接菌处理、微生物、微生境、根系形态、苗木养分对苗木质量指标影响的主要途径。实线和虚线箭头分别代表正和负效应。箭头粗细表示相关性的大小,靠近箭头的数字为路径系数。*、**和***分别表示P <0.05、P <0.01和P <0.001水平上显著
Fig.5
Drivers of seedling quality based on the partial least squares path model (PLS-PM)
图6
图6
影响苗木质量的总效应
Fig.6
Total effect on seedling quality
3 讨论
3.1 混交模式与菌根共生协同改良土壤微生境
植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标。本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应。具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] 。同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 )。球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] 。相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] 。在土壤有效养分方面,混交模式表现出基础性调控作用。T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] 。而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] 。综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境。
3.2 混交模式与菌根效应调控形态可塑性与养分积累
苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应。接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 )。这是典型的植物“吸收策略”调整。苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] 。相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关。然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 )。这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] 。苗木体内养分浓度的变化进一步阐明了上述互作的机制。AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] 。
3.3 土壤-植物系统的关键驱动路径的整合解析
通过多元统计与路径模型分析,本研究系统揭示了驱动灌木苗木生长的关键因子与因果路径。回归分析表明,土壤有效磷含量是促进根系平均直径增加的关键因子,这与资源优化理论一致,即在磷相对充足时,植物会投资构建更具运输效率的较粗根系[24 ] 。而土壤可溶性有机碳则直接驱动了比根长和根冠比的增加,凸显了土壤有效碳库作为激发根系形态可塑性、促进生物量向地下分配的重要资源与信号作用[29 ] 。偏最小二乘路径模型(PLS-PM)进一步从系统层面整合了各驱动因子(图5 )。模型揭示混交模式虽直接抑制了根系形态发育与苗木磷吸收,可能反映了初始种间竞争对资源的争夺,但其通过系统内其他补偿路径(直接促进苗木质量)产生了正向的总效应。这表明,合理混交模式的长期生态效益(改善微生境、互补利用资源)能够超越初期的竞争成本[30 ] 。与此互补,AMF接种不直接作用于最终苗木质量,而是通过促进根系形态构建→与土壤微生物协同优化微生境→增强苗木养分吸收这一系列正向间接路径来发挥作用。这证实了在半干旱区生态恢复中,AMF的核心角色是“系统增效器”,它能够有效缓解由栽植可能引发的负面竞争效应,通过增强土壤生物功能与植物生理效率来间接且强有力地驱动植物生长与系统功能[31 ] 。因此,将科学的混交模式设计与AMF接种技术相结合,是实现半干旱区灌木林高效恢复与可持续经营的优化策略。
4 结论
混交模式与AMF接种对土壤微生境具有协同增效作用。其中,蒙古扁桃-灌木铁线莲-土庄绣线菊混交模式能够通过树种间的资源互补与菌根共生机制,协同提升土壤磷的有效性并增强其结构稳定性。
苗木通过根系形态的可塑性响应菌根效应,以实现最优生长策略。AMF接种通过诱导细根发生形态可塑性,优化根系吸收策略,从而提升苗木质量指数。
土壤有效磷与可溶性有机碳是驱动土壤-植物系统功能的关键因子。AMF作为核心“系统调节器”,通过正向调控土壤微生物群落与微生境条件,间接促进苗木的养分吸收与生长表现,最终增强半干旱区灌木林的生态恢复潜力。
参考文献
View Option
[1]
秦洁 ,司建华 ,贾冰 ,等 巴丹吉林沙漠植被群落特征与土壤水分关系研究
[J].干旱区研究 ,2021 ,38 (1 ):207 -222 .
[本文引用: 1]
[2]
苏永红 ,冯起 ,司建华 ,等 土壤呼吸与测定方法研究进展
[J].中国沙漠 ,2008 ,28 (1 ):57 -65 .
[本文引用: 1]
[3]
李建林 ,冯起 ,司建华 极端干旱区胡杨吸水根系的分布与模拟研究
[J].干旱区地理 ,2008 ,31 (1 ):97 -101 .
[本文引用: 1]
[4]
崔光帅 ,罗天祥 ,梁尔源 ,等 干旱半干旱区灌丛对草本植物的促进作用研究进展
[J].植物生态学报 ,2022 ,46 (11 ):1321 -1333 .
[本文引用: 1]
[5]
孔帅锋 ,吴小健 ,黄勇来 ,等 不同杉阔混交林生态系统碳储量及其分配特征
[J/OL].森林与环境学报 ,1 -8 [2025-12-04 ].
[本文引用: 1]
[6]
张培 ,庞圣江 ,杨保国 ,等 不同混交模式对桉树林分生长、凋落物量和土壤养分的影响
[J].西北农林科技大学学报(自然科学版) ,2021 ,49 (2 ): 31 -37 .
[本文引用: 1]
[7]
Li Q C Liu Z L Jin G Z Mixed forests provide higher levels of growth and yield than monocultures across a broad range of conditions
[J].Forest Ecology and Management ,2024 ,566 :122083 .
[本文引用: 1]
[8]
李好 ,谭真平 ,桂鑫源 ,等 40 年中国植被对复合干热事件的抵抗和恢复响应及其驱动因素分析
[J/OL].生态学报 ,2025 ,45 (24 ):1 -19 [2025-12-04 ].
[本文引用: 1]
[9]
侯晖 ,颜培轩 ,谢沁宓 ,等 贺兰山蒙古扁桃灌丛根际土壤AM真菌群落多样性特征研究
[J].生态环境学报 ,2023 ,32 (5 ):857 -865 .
[本文引用: 1]
[10]
Shan R X Feng G X Wang SP et al Ectomycorrhizal dominance increases temporal stability of productivity at multiple spatial scales across US forests
[J].Global Change Biology , 2025 ,31 (3 ):e70097 .
[11]
Che Y Jin G Z Tree mycorrhizal strategies regulate diversity-productivity relationships across forest strata along soil fertility
[J].Forest Ecosystems ,2025 ,12 :100289 .
[12]
Liu S G García-Palacios P Tedersoo L et al Phylotype diversity within soil fungal functional groups drives ecosystem stability
[J].Nature Ecology & Evolution ,2022 ,6 (7 ):900 -909 .
[本文引用: 1]
[13]
Yu Y Y Ru J Y Lei B H et al Distinct response patterns of soil micro-eukaryotic communities to early-season and late-season precipitation in a semiarid grassland
[J].Soil Biology and Biochemistry ,2024 ,194 :109427 .
[本文引用: 1]
[14]
张国盛 干旱、半干旱地区乔灌木树种耐旱性及林地水分动态研究进展
[J].中国沙漠 ,2000 ,20 (4 ):363 -368 .
[本文引用: 1]
[15]
Smith SE Smith FA Roles of arbuscular mycorrhizas in plant nutrition and growth: new paradigms from cellular to ecosystem scales
[J].Annual Review of Plant Biology ,2011 ,62 :227 -250 .
[本文引用: 1]
[16]
Fu W Chen B D Ma W et al Community response of arbuscular mycorrhizal fungi to extreme drought in a cold‐temperate grassland
[J].New Phytologist ,2022 ,234 (6 ):2003 -2017 .
[本文引用: 1]
[17]
蒙陈晨 ,张克闽 ,万吉鑫 ,等 退化草地原位土壤接种丛枝菌根真菌对黄花苜蓿抗旱性的影响
[J/OL].草地学报 ,1 -16 [2025-12-04 ].
[本文引用: 1]
[18]
Liu T Y Hao L F Bai S L et al Ecoenzymatic stoichiometry and microbial nutrient limitation of shrub rhizosphere soils in response to arbuscular mycorrhizal fungi inoculation
[J].Journal of Soils and Sediments ,2022 ,22 :594 -606 .
[本文引用: 1]
[19]
王曼 ,姜永孟 ,张世良 ,等 树种混交对侵蚀退化地马尾松林土壤酶活性和碳利用效率的影响
[J].水土保持学报 ,2024 ,38 (6 ):264 -272 .
[本文引用: 1]
[20]
肖玉玲 ,胡雪 ,肖萌 ,等 毛竹纯林与混交经营中球囊霉素对土壤碳积累的贡献变化
[J].东北林业大学学报 ,2025 ,53 (11 ):114 -123 .
[本文引用: 1]
[21]
刘鑫媛 ,李玥 ,魏子艳 ,等 土壤碳氮变化对细菌、真菌群落及其相互作用的影响
[J].生物工程学报 ,2025 ,41 (10 ):3701 -3718 .
[本文引用: 1]
[22]
刘影 ,李疆枫 ,吴佳琪 ,等 干旱下草地植物糙隐子草根系和菌根真菌对土壤碳氮的影响
[J].植物生态学报 ,2025 ,49 (9 ):1388 -1398 .
[本文引用: 1]
[23]
宰学明 ,郝振萍 ,赵辉 ,等 丛枝菌根化滨梅苗的根际微生态环境
[J].林业科学 ,2014 ,50 (1 ):41 -48 .
[本文引用: 1]
[24]
Ma Z Q Guo D L Xu X L et al Evolutionary history resolves global organization of root functional traits
[J]. Nature ,2018 ,555 (7694 ):94 -97 .
[本文引用: 2]
[25]
张中峰 ,张金池 ,周龙武 ,等 丛枝菌根真菌对石漠化地区造林苗木生长的影响
[J].生态学杂志 ,2018 ,37 (10 ):2927 -2934 .
[本文引用: 1]
[26]
全民 ,杜昕鹏 ,毕银丽 露天矿排土场接种AMF对3种植物根系发育与土壤团聚体稳定性的影响
[J].水土保持研究 ,2024 ,31 (3 ):187 -194 .
[本文引用: 1]
[27]
祁金玉 ,邓继峰 ,尹大川 ,等 外生菌根菌对油松幼苗抗氧化酶活性及根系构型的影响
[J].生态学报 ,2019 ,39 (8 ):2826 -2832 .
[本文引用: 1]
[28]
杨阳 ,孙文泰 ,赵明新 ,等 果园土壤微生物与理化性质互作机制及生态功能研究进展
[J].果树学报 ,2025 ,42 (9 ):2164 -2178 .
[本文引用: 1]
[29]
周雨婷 ,肖江 ,黄欣瑞 ,等 植物根系构型对花岗岩弃渣土壤有机碳组分的影响
[J].植物生态学报 ,2025 ,49 (9 ):1485 -1497 .
[本文引用: 1]
[30]
韩小美 ,黄则月 ,程飞 ,等 望天树人工林根际土壤理化性质及微生物群落特征
[J].应用生态学报 ,2020 ,31 (10 ):3365 -3375 .
[本文引用: 1]
[31]
王光州 ,申建波 ,张俊伶 ,等 植物-土壤反馈驱动的土壤健康机制与调控策略
[J/OL].土壤学报 ,1 -15 [2025-12-04 ].
[本文引用: 1]
巴丹吉林沙漠植被群落特征与土壤水分关系研究
1
2021
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
土壤呼吸与测定方法研究进展
1
2008
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
极端干旱区胡杨吸水根系的分布与模拟研究
1
2008
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
干旱半干旱区灌丛对草本植物的促进作用研究进展
1
2022
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
不同杉阔混交林生态系统碳储量及其分配特征
1
1
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
不同混交模式对桉树林分生长、凋落物量和土壤养分的影响
1
2021
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
Mixed forests provide higher levels of growth and yield than monocultures across a broad range of conditions
1
2024
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
年中国植被对复合干热事件的抵抗和恢复响应及其驱动因素分析
1
2025
... 在半干旱地区,水分是植物生长的主要限制因子[1 ] ,同时土壤普遍贫瘠、有机质含量偏低[2 ] ,导致生态系统脆弱,植被恢复与可持续经营面临严峻挑战.在资源限制环境中,根系生长与水分吸收作为相互关联的关键过程[3 ] ,直接影响植物的存活与适应能力.灌木作为该类生态系统的重要组成部分,其合理的群落构建对维持生态平衡、提升系统稳定性具有关键作用[4 ] .在实践中,通过树种混交——即由两个或多个优势树种形成多层冠层结构的林分——可以更高效利用光、水及土壤资源,提升林分稳定性与生态功能[5 ] .科学的混交能够通过种间协调与生态互补促进植物生长[6 ] ,并在提升森林生产力、优化群落结构、增强系统韧性方面表现出优势[7 -8 ] .然而,现有研究多关于多树种混交模式的整体生态稳定性,对植被恢复过程中先期定居植物如何通过改变根围微生境影响后续乡土植物生长,尚缺乏系统探讨,而这正是半干旱区生态修复实践中亟待厘清的关键环节. ...
贺兰山蒙古扁桃灌丛根际土壤AM真菌群落多样性特征研究
1
2023
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
Ectomycorrhizal dominance increases temporal stability of productivity at multiple spatial scales across US forests
0
2025
Tree mycorrhizal strategies regulate diversity-productivity relationships across forest strata along soil fertility
0
2025
Phylotype diversity within soil fungal functional groups drives ecosystem stability
1
2022
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
Distinct response patterns of soil micro-eukaryotic communities to early-season and late-season precipitation in a semiarid grassland
1
2024
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
干旱、半干旱地区乔灌木树种耐旱性及林地水分动态研究进展
1
2000
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
Roles of arbuscular mycorrhizas in plant nutrition and growth: new paradigms from cellular to ecosystem scales
1
2011
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
Community response of arbuscular mycorrhizal fungi to extreme drought in a cold‐temperate grassland
1
2022
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
退化草地原位土壤接种丛枝菌根真菌对黄花苜蓿抗旱性的影响
1
1
... 丛枝菌根真菌(arbuscular mycorrhizal fungi, AMF)作为重要的土壤共生微生物,在改善植物水分与养分吸收、增强抗旱能力、稳定土壤结构等方面具有突出功能[9 -12 ] .在半干旱环境中,AMF能够显著提升植物群落的抗旱恢复力[13 ] ,并通过菌丝网络调节根围微环境,形成有利于植物定居与生长的土壤条件.近年来研究进一步提示,灌木混交与AMF接种可能具有协同效应.混交可通过根系空间互补与降水再分配优化土壤水分和养分的分布[14 -15 ] ,而AMF接种则可能强化植物对有限资源的获取能力,形成植物-AMF正向互馈,从而提升群落整体抗逆性与恢复潜力[16 -17 ] .因此,深入探究混交模式(即不同灌木的栽植顺序)与AMF接种的互作机制,对于协同提升植物抗逆能力、挖掘半干旱生态系统植被恢复潜力具有重要意义. ...
Ecoenzymatic stoichiometry and microbial nutrient limitation of shrub rhizosphere soils in response to arbuscular mycorrhizal fungi inoculation
1
2022
... 试验地位于内蒙古呼和浩特市内蒙古农业大学实验苗圃(40°48′47″N、111°43′16″E,海拔1 053 m).研究地属于典型的温带大陆性气候.年降水量为335.2~534.6 mm[18 ] .土壤pH为7.59,土壤有机C、碱解N和有效P含量分别为9.96 mg. g-1 、77.04 mg·kg-1 、19.75 mg·kg-1 .土壤中AMF孢子密度为每克土3.5个. ...
树种混交对侵蚀退化地马尾松林土壤酶活性和碳利用效率的影响
1
2024
... 植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标.本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应.具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] .同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 ).球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] .相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] .在土壤有效养分方面,混交模式表现出基础性调控作用.T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] .而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] .综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境. ...
毛竹纯林与混交经营中球囊霉素对土壤碳积累的贡献变化
1
2025
... 植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标.本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应.具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] .同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 ).球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] .相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] .在土壤有效养分方面,混交模式表现出基础性调控作用.T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] .而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] .综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境. ...
土壤碳氮变化对细菌、真菌群落及其相互作用的影响
1
2025
... 植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标.本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应.具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] .同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 ).球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] .相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] .在土壤有效养分方面,混交模式表现出基础性调控作用.T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] .而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] .综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境. ...
干旱下草地植物糙隐子草根系和菌根真菌对土壤碳氮的影响
1
2025
... 植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标.本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应.具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] .同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 ).球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] .相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] .在土壤有效养分方面,混交模式表现出基础性调控作用.T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] .而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] .综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境. ...
丛枝菌根化滨梅苗的根际微生态环境
1
2014
... 植物根围土壤的微生物生物量、酶活性及养分有效性是表征土壤微生境与功能的关键指标.本研究发现,混交模式与AMF接种对根围微生境具有显著的交互调控效应.具体而言,在M-G-T与T-G-M模式下,AMF接种使土壤微生物生物量磷显著增加(表1 ),这可能源于上述混交序列中深根性与浅根性灌木互补性优化了树种的生态位,并通过不同树种根系分泌物与菌根菌丝的互补效应,共同激活了土壤磷循环微生物群落的功能[19 ] .同时,AMF接种在G-M-T与M-T-G模式下显著提升了易提取球囊霉素含量(表2 ).球囊霉素作为AMF菌丝分泌的关键糖蛋白,其积累是菌根活性增强的直接标志,对于促进土壤团聚体形成、改善土壤结构与稳定性具有重要作用[20 ] .相关性分析进一步揭示,易提取球囊霉素与微生物生物量磷呈显著负相关(图3 ),这暗示在半干旱区资源受限的根围微环境中,AMF菌丝网络与土壤其他微生物群落之间可能存在对有效磷资源的竞争关系[21 ] .在土壤有效养分方面,混交模式表现出基础性调控作用.T-G-M模式无论接菌与否均维持了较高的有效氮水平(表3 ),这可能与该模式中前期栽植的土庄绣线菊(T)的快速生长与凋落物输入特性有关,为土壤氮库提供了持续补充[22 ] .而AMF的引入则进一步强化了特定混交模式的磷活化能力,在G-M-T模式下,接菌使土壤有效磷含量显著提高(表3 ),这直接印证了AMF通过扩展菌丝网络、分泌有机酸与磷酸酶以活化难溶性磷的核心功能[23 ] .综上,通过优化灌木混交模式并引入AMF,可以定向协同调控土壤微生物群落功能与关键养分循环过程,从而为苗木生长创造更有利的根围微生境. ...
Evolutionary history resolves global organization of root functional traits
2
2018
... 苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应.接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 ).这是典型的植物“吸收策略”调整.苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] .相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关.然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 ).这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] .苗木体内养分浓度的变化进一步阐明了上述互作的机制.AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] . ...
... 通过多元统计与路径模型分析,本研究系统揭示了驱动灌木苗木生长的关键因子与因果路径.回归分析表明,土壤有效磷含量是促进根系平均直径增加的关键因子,这与资源优化理论一致,即在磷相对充足时,植物会投资构建更具运输效率的较粗根系[24 ] .而土壤可溶性有机碳则直接驱动了比根长和根冠比的增加,凸显了土壤有效碳库作为激发根系形态可塑性、促进生物量向地下分配的重要资源与信号作用[29 ] .偏最小二乘路径模型(PLS-PM)进一步从系统层面整合了各驱动因子(图5 ).模型揭示混交模式虽直接抑制了根系形态发育与苗木磷吸收,可能反映了初始种间竞争对资源的争夺,但其通过系统内其他补偿路径(直接促进苗木质量)产生了正向的总效应.这表明,合理混交模式的长期生态效益(改善微生境、互补利用资源)能够超越初期的竞争成本[30 ] .与此互补,AMF接种不直接作用于最终苗木质量,而是通过促进根系形态构建→与土壤微生物协同优化微生境→增强苗木养分吸收这一系列正向间接路径来发挥作用.这证实了在半干旱区生态恢复中,AMF的核心角色是“系统增效器”,它能够有效缓解由栽植可能引发的负面竞争效应,通过增强土壤生物功能与植物生理效率来间接且强有力地驱动植物生长与系统功能[31 ] .因此,将科学的混交模式设计与AMF接种技术相结合,是实现半干旱区灌木林高效恢复与可持续经营的优化策略. ...
丛枝菌根真菌对石漠化地区造林苗木生长的影响
1
2018
... 苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应.接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 ).这是典型的植物“吸收策略”调整.苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] .相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关.然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 ).这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] .苗木体内养分浓度的变化进一步阐明了上述互作的机制.AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] . ...
露天矿排土场接种AMF对3种植物根系发育与土壤团聚体稳定性的影响
1
2024
... 苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应.接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 ).这是典型的植物“吸收策略”调整.苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] .相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关.然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 ).这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] .苗木体内养分浓度的变化进一步阐明了上述互作的机制.AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] . ...
外生菌根菌对油松幼苗抗氧化酶活性及根系构型的影响
1
2019
... 苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应.接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 ).这是典型的植物“吸收策略”调整.苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] .相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关.然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 ).这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] .苗木体内养分浓度的变化进一步阐明了上述互作的机制.AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] . ...
果园土壤微生物与理化性质互作机制及生态功能研究进展
1
2025
... 苗木的根系形态与养分积累对AMF处理表现出显著的可塑性响应.接种AMF深刻影响了细根形态构建,在G-M-T和M-G-T模式下,苗木的比根长与比表面积均出现极显著增加(图1 ).这是典型的植物“吸收策略”调整.苗木通过形成更多、更细的根系,并与AMF共生,极大地扩展其在土壤中的吸收范围,从而更高效地获取水分和养分[24 -25 ] .相反,在T-M-G模式下,接菌导致根系平均直径显著降低,这同样是一种适应性策略,即苗木减少了对粗根(运输功能)的投资,转而更加依赖AMF菌丝网络进行养分获取,体现了在环境胁迫下碳分配策略的转变[26 ] ,上述根系构型的改变与整体质量密切相关.然而,评价苗木综合质量的苗木质量指数对AMF接种的响应更为复杂(图2 ).这表明,AMF接种的促进效应取决于其与特定树种组合产生的互作结果,可能通过改善水分和养分状况来提升苗木抗逆性与质量,也可能在竞争较强的组合中加剧资源权衡[27 ] .苗木体内养分浓度的变化进一步阐明了上述互作的机制.AMF在特定模式中显示出提升氮浓度的潜力,凸显了菌根在优化氮素养分的获取与利用效率[28 ] . ...
植物根系构型对花岗岩弃渣土壤有机碳组分的影响
1
2025
... 通过多元统计与路径模型分析,本研究系统揭示了驱动灌木苗木生长的关键因子与因果路径.回归分析表明,土壤有效磷含量是促进根系平均直径增加的关键因子,这与资源优化理论一致,即在磷相对充足时,植物会投资构建更具运输效率的较粗根系[24 ] .而土壤可溶性有机碳则直接驱动了比根长和根冠比的增加,凸显了土壤有效碳库作为激发根系形态可塑性、促进生物量向地下分配的重要资源与信号作用[29 ] .偏最小二乘路径模型(PLS-PM)进一步从系统层面整合了各驱动因子(图5 ).模型揭示混交模式虽直接抑制了根系形态发育与苗木磷吸收,可能反映了初始种间竞争对资源的争夺,但其通过系统内其他补偿路径(直接促进苗木质量)产生了正向的总效应.这表明,合理混交模式的长期生态效益(改善微生境、互补利用资源)能够超越初期的竞争成本[30 ] .与此互补,AMF接种不直接作用于最终苗木质量,而是通过促进根系形态构建→与土壤微生物协同优化微生境→增强苗木养分吸收这一系列正向间接路径来发挥作用.这证实了在半干旱区生态恢复中,AMF的核心角色是“系统增效器”,它能够有效缓解由栽植可能引发的负面竞争效应,通过增强土壤生物功能与植物生理效率来间接且强有力地驱动植物生长与系统功能[31 ] .因此,将科学的混交模式设计与AMF接种技术相结合,是实现半干旱区灌木林高效恢复与可持续经营的优化策略. ...
望天树人工林根际土壤理化性质及微生物群落特征
1
2020
... 通过多元统计与路径模型分析,本研究系统揭示了驱动灌木苗木生长的关键因子与因果路径.回归分析表明,土壤有效磷含量是促进根系平均直径增加的关键因子,这与资源优化理论一致,即在磷相对充足时,植物会投资构建更具运输效率的较粗根系[24 ] .而土壤可溶性有机碳则直接驱动了比根长和根冠比的增加,凸显了土壤有效碳库作为激发根系形态可塑性、促进生物量向地下分配的重要资源与信号作用[29 ] .偏最小二乘路径模型(PLS-PM)进一步从系统层面整合了各驱动因子(图5 ).模型揭示混交模式虽直接抑制了根系形态发育与苗木磷吸收,可能反映了初始种间竞争对资源的争夺,但其通过系统内其他补偿路径(直接促进苗木质量)产生了正向的总效应.这表明,合理混交模式的长期生态效益(改善微生境、互补利用资源)能够超越初期的竞争成本[30 ] .与此互补,AMF接种不直接作用于最终苗木质量,而是通过促进根系形态构建→与土壤微生物协同优化微生境→增强苗木养分吸收这一系列正向间接路径来发挥作用.这证实了在半干旱区生态恢复中,AMF的核心角色是“系统增效器”,它能够有效缓解由栽植可能引发的负面竞争效应,通过增强土壤生物功能与植物生理效率来间接且强有力地驱动植物生长与系统功能[31 ] .因此,将科学的混交模式设计与AMF接种技术相结合,是实现半干旱区灌木林高效恢复与可持续经营的优化策略. ...
植物-土壤反馈驱动的土壤健康机制与调控策略
1
1
... 通过多元统计与路径模型分析,本研究系统揭示了驱动灌木苗木生长的关键因子与因果路径.回归分析表明,土壤有效磷含量是促进根系平均直径增加的关键因子,这与资源优化理论一致,即在磷相对充足时,植物会投资构建更具运输效率的较粗根系[24 ] .而土壤可溶性有机碳则直接驱动了比根长和根冠比的增加,凸显了土壤有效碳库作为激发根系形态可塑性、促进生物量向地下分配的重要资源与信号作用[29 ] .偏最小二乘路径模型(PLS-PM)进一步从系统层面整合了各驱动因子(图5 ).模型揭示混交模式虽直接抑制了根系形态发育与苗木磷吸收,可能反映了初始种间竞争对资源的争夺,但其通过系统内其他补偿路径(直接促进苗木质量)产生了正向的总效应.这表明,合理混交模式的长期生态效益(改善微生境、互补利用资源)能够超越初期的竞争成本[30 ] .与此互补,AMF接种不直接作用于最终苗木质量,而是通过促进根系形态构建→与土壤微生物协同优化微生境→增强苗木养分吸收这一系列正向间接路径来发挥作用.这证实了在半干旱区生态恢复中,AMF的核心角色是“系统增效器”,它能够有效缓解由栽植可能引发的负面竞争效应,通过增强土壤生物功能与植物生理效率来间接且强有力地驱动植物生长与系统功能[31 ] .因此,将科学的混交模式设计与AMF接种技术相结合,是实现半干旱区灌木林高效恢复与可持续经营的优化策略. ...



 甘公网安备 62010202000688号


