

0 引言
土壤细菌在土壤环境中扮演着至关重要的作用,作为土壤微生物组分的重要部分,负责土壤中众多生理活动的发生[9]。土壤细菌群落提供了多种生态系统服务,直接和间接影响土壤环境的整体功能。许多土壤细菌产生多糖或糖蛋白,形成土壤颗粒表面的保护层,从而起到黏结剂的作用,改善土壤结构[10]。细菌参与氮循环和碳循环等多种生物地球化学循环,生成大量的土壤和植物所需营养元素。此外,细菌通过促进自然演替过程来提升土壤质量,使得新的植物群落得以生存。土壤中的细菌还通过酶促降解复杂有机物和土壤物质,将其转化为营养元素,并从矿物土壤部分释放营养元素和微量元素[11]。土壤细菌群落还可以作为土壤状况的指示器。因此,探究硅肥介导植物-土壤生态区系-土壤细菌群落互作对缓解连作障碍、提高作物生产力有现实指导意义。
本研究选择了连续种植兰州百合9年的连作地块,设计了2个处理(CK:未施硅,SF:硅肥处理),持续进行了3年连续施用硅肥的试验(兰州百合栽培周期为3年),收集了4类土壤样品NSB(未施硅肥的根区土壤)、SB(施硅肥的根区土壤)、NSR(未施硅肥的根际土壤)和SR(施硅肥的根际土壤),测定其土壤理化性状和细菌多样性指标,以探究在外源硅肥施入模式下,根际土壤细菌群落重建的基本特征及其与土壤理化性状之间的关系,为最终阐明硅肥缓解兰州百合连作障碍的根际生物土壤生物化学机理提供理论基础。
1 材料与方法
1.1 研究区概况及供试材料
试验样地为连续种植兰州百合9年的连作地块。位于中国西部甘肃省定西市临洮县中铺镇蒋家山村(35°49′11″—35°49′13″N,103°53′12″—103°53′14″E),地形属于高山坡地,平均海拔2 330 m,气候温凉,半湿润,无霜期较短,该地区2019、2020、2021年降雨量分别为300~400、350~450、300~400 mm,集中在7—9月(夏秋季),且多以短历时强降水形式出现。
供试百合种球:选用质量17±2 g,根系健壮、无腐烂、色白、无分头、大小均匀一致的一级商品种球。
供试肥料:硅肥由河北廊坊五和农业科技有限公司提供,有效成分为SiO2,含量70%±3%。
1.2 试验设计
本试验设计2个处理:SF(硅肥)、CK(空白对照)。兰州百合从母籽栽植到长成商品百合需要3年时间,因此连续处理3年。随机区组设计,3次重复,小区面积为2 m×5 m。于2019年4月中下旬,将兰州百合以每株0.30 m×0.15 m的密度(鳞茎种子重约17±2 g)播种,有机肥按11 250 kg·hm-2的用量作为基肥施入,同年8月将硅肥按30 kg·hm-2的用量沿百合种植行单侧开沟,沟距植株基部20 cm,均匀撒入沟内后覆土。后分别于2020年7月和2021年6月对试验地进行施肥处理。田间管理措施均采用旱作栽培,试验期间无人工灌溉,仅依靠自然降水。
土样采集:采集植物根际及根区土样进行测试。共收集4类土样,分别为NSB(对照根区土壤)、SB(施硅肥的根区土壤)、NSR(对照根际土壤)和SR(施硅肥的根际土壤)。土壤采样于3年生百合盛花期(2021-07-24)取得。在距离植株根系10 cm、深度20 cm处采集土样(土钻五点取样法)。晃动根部,去除根部松散土壤后,使用无菌刷子从根部收集残留土壤样本。每个小区随机选择5个植株采样,土壤样品混合后过1 mm筛。各处理土样分别取10 g装入离心管,立即用液氮冷冻,置于-80 ℃冰箱保存,用于土壤细菌群落结构的测定。剩余土样置于阴凉处自然风干,用于土壤理化性状等指标的测定。
1.3 测定指标与方法
1.3.1 植株农艺性状测定
兰州百合生长旺盛期(2019-8-29、2020-7-2),每个小区随机选择5株长势均匀一致的百合植株,分别采用直尺测定株高(植物根颈至生长点)、数显电子游标卡尺测定茎粗(植株根颈处的直径)和千分之一电子天平测量地上(地下)部干(鲜)重。
1.3.2 植株土壤理化性质测定
用HANNA HI8314便携式pH仪表按照V土∶V水=1∶5测定土壤pH值,土壤理化性状[12](碱解氮、速效钾、有效硅含量、速效磷和有机质)分别采用(碱解扩散法、1.0 mol·L-1醋酸铵浸提—火焰光度法、0.025 mol·L-1柠檬酸浸提—硅钼蓝比色法、0.5 mol·L-1碳酸氢钠浸提—钼锑抗比色法和重铬酸钾容量法)。
1.3.3 土壤微生物的高通量测序
DNA提取及PCR扩增在已发表的文章中有详细描述[13]。在PCR扩增的过程中,细菌16S r RNA基因的V3-V4高变区由正向引物338-F(5'- ACTCCTACGGGAGGCAGCAG-3')和反向引物806-R(5'-GGACTACHVGGGTWTCTAAT-3')产生,真菌扩增子由正向引物ITS1-F(5'-CTTGGTCATT‐TAGAGGAAGTAA-3')和反向引物ITS1-R(5'-TGC‐GTTCTTCATCGATGC-3')产生,在Allwegene Com‐pany(北京)的Miseq平台上进行深度测序。运行后,使用Illumina Analysis Pipeline Version2.6执行图像分析、碱基检出和错误估计。
1.4 数据分析
土壤微生物多样性数据于联川生物云平台(OmicStudio)进行分析。基于OTUs水平,使用R软件生成维恩图。使用Mothur软件计算Chao1和Shannon指数。对每个代表性序列用SILVA数据库注释细菌特征序列。应用主坐标成分分析(PCoA)检验不同采样点间细菌群落的相似性;通过LEfSe分析筛选差异支系。通过RDA冗余分析解析细菌群落与土壤理化性状的关系,采用STAMP分析进行细菌功能预测。
数据采用SPSS 26.0进行方差分析及Duncan's多重比较进行不同处理的差异显著性(P<0.05)的检测,采用Origin 2022b进行图表绘制。
1.5 微生物测序登记号
本部分数据提交的数据库信息为:NCBI Sequence Read Archive (SRA) under the Bioproject 2021G12lyyA001-C42。
2 结果与分析
2.1 硅肥处理下兰州百合的植株生长状况
与不施肥相比,施入硅肥对兰州百合生长指数影响显著,有利于植株生长(表1)。茎粗/株高、根冠比(鲜重)和根冠比(干重)是以不同方式体现植株综合性壮苗指数的指标。茎粗/株高直观反映植物的健壮程度和生长势,其值越高则代表植株长势越高,地下部比地上部生长好,幼苗越好,植株越健壮;根冠比(鲜重)是植物地下部分生长量与地上部分生长量的比值,其值越高代表植物根系越发达;根冠比(干重)反映了植物在生长过程中将光合产物在地下部分和地上部分进行分配的比例,其值越高代表根部分配的越多,根系发育越好。在连续3年的硅肥处理中,植物壮苗指数较CK均有显著提高。在百合生长的第3年(2021年),SF处理的茎粗/株高、根冠比(鲜重)和根冠比(干重)分别较CK显著增加8.82%,19.35%和3.73%。因此SF处理调节了兰州百合地下部分与地上部分之间的生物量分配,可促进地下部分生物量积累。
表1 硅肥处理对兰州百合植株生长指标的影响
Table 1
| 采样时间 | 处理 | 茎粗/株高 | 根冠比(鲜重) | 根冠比(干重) |
|---|---|---|---|---|
| 2019 | CK | 0.23±0.01b | 1.40±0.02a | 1.14±0.01b |
| SF | 0.27±0.01a | 1.42±0.02a | 1.21±0.00a | |
| 2020 | CK | 0.33±0.00b | 2.25±0.01b | 3.50±0.05a |
| SF | 0.34±0.00a | 2.35±0.01a | 3.51±0.06a | |
| 2021 | CK | 0.34±0.01b | 1.24±0.05b | 1.34±0.10a |
| SF | 0.37±0.01a | 1.48±0.15a | 1.39±0.07a |
2.2 硅肥对百合根区土壤和根际土壤理化性状的影响
4种土样间土壤理化性状差异显著,硅肥对土壤理化性质有一定的改善效果(表2)。对根际土壤而言,施入硅肥以后,有效硅含量和电导率显著增加,pH显著降低;对根区土壤而言,施入硅肥以后,电导率显著增加;对根际与根区土壤而言,在硅肥处理条件下,根际土壤的碱解氮、有效钾、电导率含量较根区土壤显著增加,pH较根区土壤显著降低;在没有施入外源硅的条件下,根际土壤的碱解氮、有效钾较根区土壤显著增加,pH较根区土壤显著降低。综上所述,无论施硅肥与否,根际土壤的养分水平均高于根区土壤。
表2 硅肥处理对兰州百合土壤理化性质的影响
Table 2
| 土样 | NSB | SB | NSR | SR |
|---|---|---|---|---|
| 有效硅/(mg∙kg-1) | 154.02±2.71c | 158.69±0.43ab | 157.69±0.56bc | 162.31±0.51a |
| 有效磷/(mg∙kg-1) | 55.20±3.31a | 54.32±2.44a | 53.49±2.58a | 52.40±2.52a |
| 电导率/(mS∙cm-1) | 1.86±13.77c | 1.92±35.99b | 2.16±36.74bc | 2.44±32.76a |
| 碱解氮/(mg∙kg-1) | 33.60±1.48b | 32.84±1.04b | 38.70±1.25a | 39.93±0.99a |
| 有效钾/(mg∙kg-1) | 186.19±9.74c | 217.50±15.84bc | 232.67±10.20ab | 257.11±6.00a |
| 有机质/(g∙kg-1) | 48.19±0.66ab | 46.47±1.07b | 50.46±0.26ab | 46.64±1.30b |
| pH | 8.64±0.02a | 8.61±0.02a | 8.38±0.03b | 8.17±0.04c |
2.3 硅肥处理对百合根区土壤和根际土壤细菌群落的影响
2.3.1 土壤细菌α多样性和β多样性
对细菌16SrRNA V3-V4高变区进行测序,共获得777 927条高质量、无嵌合的读数(图1)。在NSB、SB、NSR和SR土壤样品分别得到了202 954、205 535、187 306、33 703条序列。OTU分布Venn分析显示,NSB、SB、NSR、SR土壤样品中特有的OTU分别为6 097、3 959、4 537、4 408个,共24 154个OTU。其中NSB特有的OTU数最多,SR最少。
图1
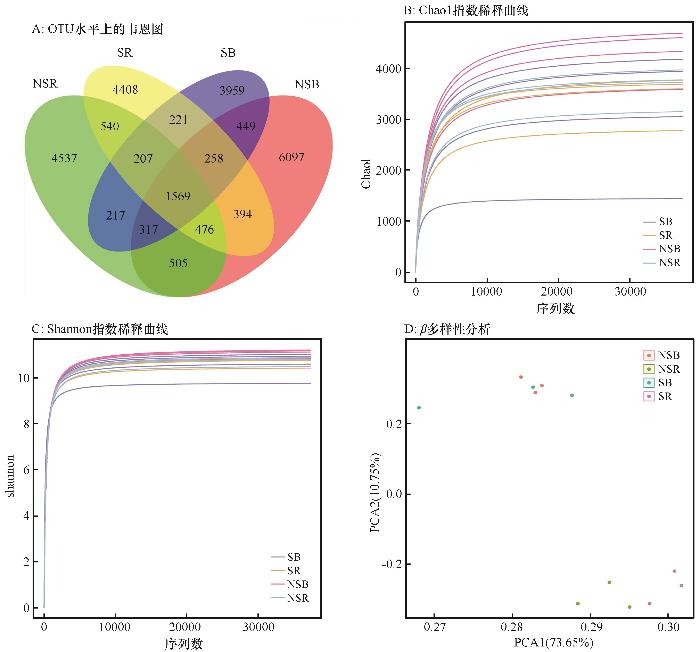
图1
不同土样土壤细菌α多样性和β多样性分析
Fig.1
The bacterial diversity analysis of α and β in different soil samples
α多样性指数基于OTUs评价,选取Chao1和Shannon指数评价,前者表示细菌丰度,后者表示细菌多样性。结果表明,两个指数在各土壤样品间没有显著差异。
β多样性分析分析结果表明,4种土样分成两个集群:SB和NSB细菌群落,SR和NSR细菌群落。第一原则坐标轴(PCA1)贡献了总变异的73.65%,第二坐标轴(PCA2)贡献了10.75%的变异,解释了84.40%的变异。结果表明,细菌群落在SB和NSB之间具有相似性,在SR和NSR之间具有相似性。SB、NSB、SR和NSR的土壤细菌群落结构均具有显著差异。
2.3.2 土壤细菌的分类学分布
通过OTU及其分类学Heatmap分析,对丰度前7的细菌门和丰度前30的细菌属进行聚类分析结果表明:在门水平和种水平下,NSB和NSR的土壤样品中的细菌群落聚成一类,而SB处理和NSB的土壤样品中的细菌群落聚成一类(图2)。由此说明,无论施硅肥与否根区土壤细菌群落具有相似性,而根际土壤的细菌群落具有相似性。
图2
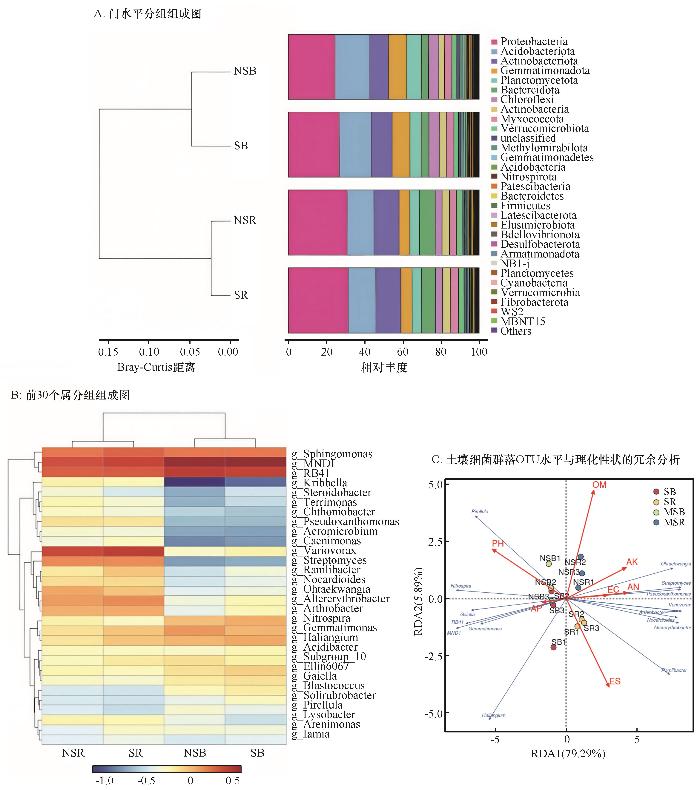
图2
硅肥处理下百合土壤细菌结构全分析
Fig.2
Overall bacterial community structures after silicon fertilizer treatments of Lanzhou Lily
土壤样品中共鉴定出55个细菌门,优势门(平均RA>5%)包括Proteobacteria(变形菌门)、Acidobacteriota(酸杆菌门)、Actinobacteriota(放线菌门)、Gemmatimonadota(芽单胞菌门)、Planctomycetota(浮霉菌门)、Bacteroidota(拟杆菌门)和Chloroflexi(绿弯菌门),分别占细菌总数的28.41%、15.97%、11.67%、7.68%、5.86%和5.79%。变形菌门在NSR和SR中相对丰度高,分别占31.40%和30.88%,在NSB和SB中分别占24.70%和27.75%。根区土壤中酸杆菌门相对丰度显著高于根际土壤,根际土壤中放线菌门、芽单胞菌门和拟杆菌门相对丰度显著高于根区土壤。在属水平上鉴定到949个属,其中优势属(平均RA>1%)共有16个。平均RA>1%且能被分类的属包括MND1、RB41、Sphingomonas、Variovorax(贪噬菌属)、Gemmatimonas(芽单孢菌属)、Haliangium(嗜盐囊菌属)和Altererythrobacter(交替赤杆菌属),其平均相对丰度分别为3.31%、2.55%、1.87%、1.69%、1.14%、1.10%和1.05%。其中,Sphingomonas在SR土样中相对丰度最高,MND1和RB41在根区土壤(NSB和SB)中的相对丰度均高于根际土壤(NSR和SR),其余细菌在根际土壤中的相对丰度均高于根区土壤。
RDA模型显示,土壤理化性质的7个指标对微生物群落分布的影响显著,其中RDA1和RDA2分别解释了总变量的79.29%和5.89%,累计贡献率达85.12%。在这些指标中,有机质、有效硅和pH与细菌的RDA相关度较其他环境因子更高,其中有机质的箭头连线最长,它们与其他的环境因子共同影响着土壤细菌群落结构和物种构成。它们与其他的环境因子共同影响着土壤细菌群落分布和物种分布。有机质(OM)与Ohtaekwangia存在较强的正相关关系;土壤pH与Pirellula存在较强的正相关关系;有效硅(ES)和Ramlibacter存在较强的正相关关系;速效钾(AK)与Ohtaekwangia存在较强的正相关关系;电导率(EC)和碱解氮(AN)与Streptomyces和Pseudoxanthomonas箭头重合,呈极显著正相关。细菌与有机质、有效硅、速效钾、碱解氮、和EC值呈正相关,与pH和速效磷呈负相关。RDA表明NSB、SB、NSR和SR土壤样品聚在一起,且分布在不同象限,各土样间差异显著。
2.3.3 土壤细菌LEfSe分析
LEfSe分析显示,在 硅肥处理下,根区和根际的细菌类群变化显著(图3)。结果表明:对于根际土壤而言,在NSR和SR之间有12个不同的细菌组。对于根区土壤,在NSB和SB之间有12个不同的细菌组。
图3
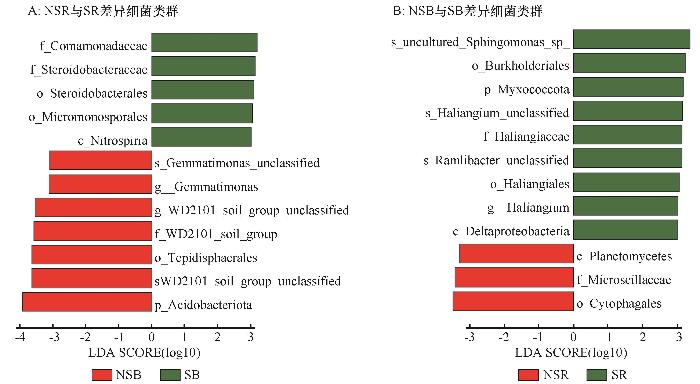
图3
土壤优势细菌的 LEfSe 分析
Fig.3
The LDA obtained from the LEfSe analysis shows the relative abundance of dominant bacterial communities in the soil of silicon fertilizer treatments in Illumina Miseq Lanzhou lily
2.3.4 土壤细菌功能的预测
基于STAMP软件分析物种功能差异,开展细菌菌群功能预测,结果显示,在根区土壤的两类土样(SB与NSR)中,共有28个代谢存在显著差异(图4),而对于根际土壤,SR土样中细菌的亚油酸代谢显著高于NSR;而磷酸转移酶系统显著低于NSR。
图4
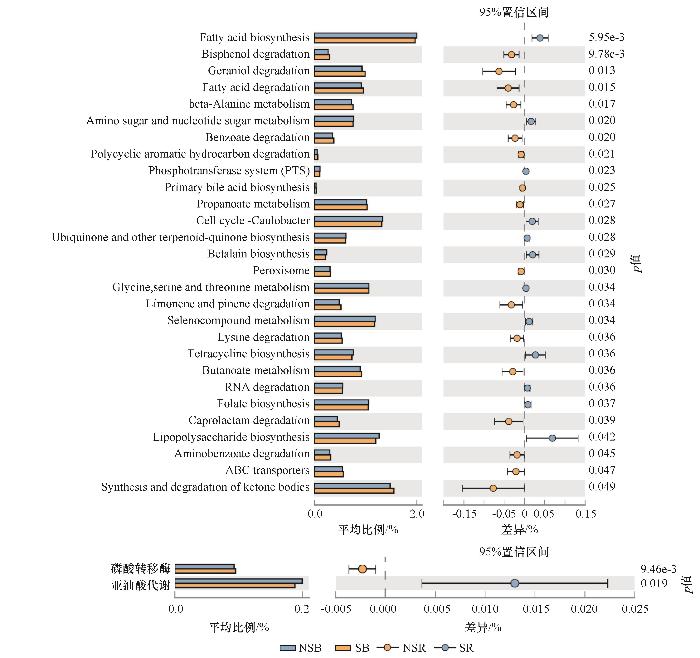
图4
不同处理土壤细菌功能预测
Fig.4
Bacterial functions prediction under different treatments
3 讨论
已有研究表明,连作兰州百合栽培田中施入硅肥,可优化根区土壤微生物区系,提高土壤质量,百合植株生长量、鳞茎产量品质均得到显著提升,因此连作障碍得以缓解[5-7]。施用硅肥,可以促进百合植株的生长,提升植株的壮苗指数[5]。与根区土壤相似,硅肥处理也优化了根际土壤理化性状及土壤细菌群落结构。β多样性分析结果(图1)与细菌群落组成分析结果(图2)结果均表明,根区两个处理的细菌群落之间具有相似性,根际土壤的两个处理真菌群落之间具有相似性,说明根系分泌物对于细菌群落调控的影响显著大于硅肥的调控效应。在农田生态系统中,根系分泌物是植物重要的次生代谢物质,对土壤根际微生态系统的活力和功能起着至关重要的调节作用[14]。植株根部土壤分根际土壤与根区土壤。因此,根际土壤生态环境受到根系分泌物的影响远大于根区土壤。该事实也合理地解释了根际土壤与根区理化性状存在显著差异的原因。
本研究发现,硅肥能有效改善土壤的理化性状,提高根区土壤和根际土壤的有效硅含量和EC值,降低了根际土壤的pH值。EC值是衡量土壤中溶解盐分含量的重要指标,可以反映土壤的含盐量[15]。EC值主要表征土壤可溶性大量元素(N,P,K)和微量元素。在0~3的水平,EC值的显著增加显示土壤矿质营养水平显著提升,是土壤速效养分的评价指标[16]。本研究结果显示,各土壤的EC值为1.86~2.44,施硅肥后,根际土壤EC值增加幅度显著高于根区土壤,前者是后者的3.89倍;而且SR土样的EC值比NSR土样的EC值增加了11.09%,SB土样的EC值比NSB土样的EC值增加了2.85%。由此显示,施用硅肥可以显著活化土壤养分,由于根系分泌物的参与,其对根际土壤养分的提升效果显著高于根区土壤。大量研究证明,硅肥通过活化土壤养分,提高土壤肥力水平,是其促进植物生长的基本作用机理[4]。已有研究对1年生,2年生兰州百合硅肥处理后的根区土壤理化性状的测定结果也支持上述结论[8]。而关于根系分泌物在根际土壤表现出的较强活化土壤养分的效应,在兰州百合栽培中首次报道。前期研究发现,兰州百合存在多种根系分泌物[8]。在诸多的根系分泌物中,酚酸类物质为重要的一类。该类物质可通过还原反应、配位反应和酸化反应来活化根际土壤中的难溶性养分,从而促进养分的吸收和利用[17]。因此,硅肥施入所引起的根系分泌物组分变化(如酚酸类物质),是其活化土壤养分的基本原因。
土壤pH是衡量土壤酸碱度的核心指标,其直接影响植物养分吸收、微生物活动及土壤结构,最终决定作物生长和土壤肥力[18]。本研究发现各土样的pH均大于8。对于该情况,有两个解释:一是该现象属于兰州地区百合种植区土壤母质为黄土,碳酸盐含量较高,导致区域土壤整体呈强碱性;二是试验地长期施用有机肥和化肥等造成土壤pH偏高。通常情况下,该pH条件是兰州百合适宜生长的范围。根外施肥对兰州百合植株生长和鳞茎产量的影响研究中测定的土壤pH为8.1[19]、卢堃等[20]在甘肃不同种植区兰州百合矿质营养元素差异分析研究中测得永靖县的土壤pH为8.47;此外,前期研究了0~9年的兰州百合连作土壤发现,随着连作年限增加土壤pH在连作第9年时达到了7.99[13]。本研究的土壤pH值属于合理范围。另一方面,本研究中的测定的土壤pH最高值为8.64,据此推测,在连作条件下,兰州百合可能受到了一定的酸度逆境胁迫,我们发现,在根际土壤中,硅肥处理后显著降低了土壤pH,因此,这也是硅肥缓解连作障碍的机制。此外,根际土壤pH 显著低于根区土壤,其原因可能是由于根系分泌的酚酸类物质所致。
基于STAMP软件开展细菌菌群功能预测结果显示,根际土壤中,施用硅肥处理后(SR土样)细菌亚油酸代谢显著提高,而磷酸转移酶系统显著降低(图5)。亚油酸作为脂肪酸,可通过β-氧化分解为乙酰辅酶A,进入三羧酸循环(TCA)和电子传递链,为微生物生长繁殖提供能量和碳骨架。因此,亚油酸代谢途径是微生物适应环境、获取能量及与外界互作的重要环节[28]。因此,亚油酸代谢途径的增强是细菌应对环境压力、优化生存策略的重要机制,其意义涵盖能量代谢、膜稳态维持、抗逆性提升、次级代谢调控及生态位竞争等多个层面[29-30]。另一方面,PTS是微生物转运碳源的关键系统,不仅控制氮代谢、调控铁、钾稳态、调节某些病原体的毒力,还介导了营养胁迫、理化因素刺激等压力条件下的应激反应[31],该代谢途径调控是微生物在复杂生态环境中生存和竞争的重要机制[32]。PTS功能下降并非单纯的“功能缺陷”,而是细菌在特定环境压力下的代谢策略重塑。其意义包括代谢途径切换、应激响应激活、毒力调控及生态位调整等[33-34]。这种适应性变化体现了微生物通过代谢网络可塑性维持生存的进化策略[35]。综上,硅肥处理后,所引起的细菌亚油酸代谢降低及磷酸转移酶系统代谢的增强,是其重塑代谢途径,以增强其应对环境压力,优化生存策略的重要机制。另一方面,在根区(NSB与SB之间)与根际土壤(NSR与SR之间),分别有28个,2个途径产生了显著变化。由此表明,根系分泌物在微生物代谢途径中的调控的重要意义,还需深入研究 。
4 结论
施用硅肥能有够有效改变土壤理化性状,提高土壤矿质营养水平;根系分泌物对于细菌群落调控的影响显著大于硅肥的调控效应。硅肥处理对于根系微生物区系有重要影响,硅肥处理后特定有益生细菌(如Sphingomonas)的积累是其提高土壤健康性,缓解连作障碍的重要生物学机制。
参考文献
Allelochemicals from the rhizosphere of Lanzhou lily:discovery of the autotoxic compounds of a bulb crop
[J].
Silicon
[J].
Silicon uptake and accumulation in higher plants
[J].
Biochar as a strategy to manage plant diseases caused by pathogens inhabiting the soil:a critical review
[J].
硅肥和微生物菌剂配施对连作兰州百合(Lilium davidii var.unicolor)生长及土壤生化性质的影响
[J].
Silicon fertilizer and microbial agents changed the bacterial community in the consecutive replant soil of lilies
[J].
In vitro study of the growth,development and pathogenicity responses of Fusarium oxysporum to phthalic acid,an autotoxin from Lanzhou lily
[J].
The seeds of Plantago lanceolata comprise a stable core microbiome along a plant richness gradient
[J].
Ecosystem services and multifunctionality are co-regulated by biotic and abiotic factors along with forest types in a temperate forest of South Korea
[J].
The use of solid-state fermentation to address the treatment of papermaking black liquor and improve the quality of fermented products
[J].
Soil fungal diversity loss and appearance of specific fungal pathogenic communities associated with the consecutive replant problem (CRP) in lily
[J].
Azotobacter chroococcum and Pseudomonas putida enhance pyrroloquinazoline alkaloids accumulation in Adhatoda vasica hairy roots by biotization
[J].
Effects of biochar and freeze-thaw cycles on the bacterial community and multifunctionality in a cold black soil area
[J].
Combined application of microbial inoculant and kelp-soaking wastewater promotes wheat seedlings growth and improves structural diversity of rhizosphere microbial community
[J].
Bioorganic fertilizer promotes pakchoi growth and shapes the soil microbial structure
[J].
Nitrogen leaching greatly impacts bacterial community and denitrifiers abundance in subsoil under long-term fertilization
[J].
Bacterial communities as indicators of soil health under a continuous cropping system
[J].
Phenolic acids alleviated consecutive replant problems in lily by regulating its allelopathy on rhizosphere microorganism under chemical fertiliser reduction with microbial agents in conjunction with organic fertiliser application
[J].
Protection of Arabidopsis thaliana against leaf-pathogenic Pseudomonas syringae by Sphingomonas strains in a controlled model system
[J].
Linoleic acid metabolism activation in macrophages promotes the clearing of intracellular Staphylococcus aureus
[J].
Short chain fatty acid biosynthesis in microalgae Synechococcus sp.PCC 7942
[J].
Metabolic engineering of fatty acyl-ACP reductase-dependent pathway to improve fatty alcohol production in Escherichia coli
[J].
Ecological development as niche construction:how plasticity shapes the environment an organism experiences
[M]//
Broad-spectrum tolerance to disinfectant-mediated bacterial killing due to mutation of the PheS aminoacyl tRNA synthetase
[J].
Regulatory roles of the bacterial nitrogen-related phosphotransferase system
[J].
Metabolic reprogramming under microaerobic and anaerobic conditions in bacteria
[M]//Wang X,Chen J,Quinn P.

 甘公网安备 62010202000688号


