

0 引言
总初级生产力(Gross Primary Productivity,GPP)表示植被通过光合作用固定的总碳量,其变化直接影响陆地碳汇强度及其对气候变化的反馈[5];日光诱导叶绿素荧光(Solar-Induced chlorophyll Fluorescence,SIF)来源于叶绿素吸收光能后未被光化学反应和热耗散利用的荧光发射部分,能够用于实时追踪植被生理代谢活性,被广泛用于全球尺度植被光合作用监测[6-7]。因此,二者虽均与植被光合作用关系紧密,但不能简单等同[8]。SIF主要反映光能吸收和能量分配的生理信号,表征光系统对环境变化的即时响应;而GPP作为碳同化结果,除受光合生理活性影响外,还受到叶面积、冠层结构、水分供应等多重因素共同调节[9]。SIF和GPP共同构成从生理活性到固碳结果的完整链条。
基于此,本研究利用经多源卫星数据融合的SIF数据和完全独立于SIF构建的GPP数据,以2002—2024年全球陆地植被为研究对象,系统分析了全球植被光合生理与总初级生产力的时空演变特征及关键水热驱动因素,厘清了不同气候类型和植被类型下主导水热驱动因子的差异,并深入解析了关键水热因子在不同长期变化趋势下的非线性特征、阈值效应与非对称性驱动机制,旨在深化对气候变化背景下植被光合与碳同化过程响应机制的科学认识,为完善全球碳循环模型和优化气候变化应对策略提供科学依据。
1 数据与方法
1.1 数据来源及处理
1.1.1 日光诱导叶绿素荧光( SIF )数据
本研究采用长时序多源卫星融合日光诱导叶绿素荧光全球数据集LHSIF(Version v2)[16]。该数据集时间跨度为1995年至2024年,空间分辨率为0.05°,时间分辨率为月。该数据通过光利用效率(LUE)空间降尺度模型和累积分布函数(CDF)匹配方法,对GOME、SCIAMACHY、GOME-2和OCO-2等多源卫星的SIF观测数据进行了严格的时空一致性校正,以经过物理辐射校正的GOME-2A SIF为基准,有效消除了虚假长期趋势,使多源传感器间的差异降低了49%以上,且与全球多个站点的塔基地面SIF实测数据表现出高度的时空一致性(相关系数R>0.60),能为长时间尺度下全球植被光合动态评估提供连续、稳定且高精度的生理基准数据[17]。
1.1.2 植被总初级生产力( GPP )数据
植被总初级生产力数据采用全球TRAX GPP(Version v2)数据集,空间分辨率为0.05°,时间分辨率为月,时间跨度覆盖2001年至2024年[18]。该数据集基于稳健的季节-趋势分解(RSTL)与长短期记忆网络(LSTM)相结合的混合深度学习框架构建。在特征工程方面,该模型集成了气温、降水和饱和水汽压差等气象数据,以及NDVI、EVI、NDWI、NIRv、LAI和fPAR等遥感绿度数据,并融合了NOAA CT2022与CAMS产品的大气CO₂同化数据[19]。该GPP产品在训练、优化和模拟生成过程中未受到任何SIF先验信号的交叉干扰,能够有效避免后续统计建模和机理分析中数据源交叉而导致的循环论证风险。在数据验证上,基于全球通量网络(如FLUXNET等)的涡度相关塔站点交叉验证表明该产品具有极高的预测精度(中位数R2=0.82)。
1.1.3 水热驱动因子数据
表1 水热驱动因子变量
Table 1
| 水热驱动因子 | 类别 | 单位 | ERA5-Land变量名 |
|---|---|---|---|
| 总降水量(tp) | 水 | m | Total precipitation |
| 地下径流(ssro) | 水 | m | Sub-surface runoff |
| 地表径流(sro) | 水 | m | Surface runoff |
| 植被蒸腾蒸发(evavt) | 水 | m(水当量) | Evaporation from vegetation transpiration |
| 潜在蒸散发(pev) | 水 | m | Potential evaporation |
| 总蒸散发(e) | 水 | m(水当量) | Total evaporation |
| 地表储水量(src) | 水 | m(水当量) | Skin reservoir content |
| 土壤体积含水量1(swvl1) | 水 | m3·m-3 | Volumetric soil water (layer 1) |
| 土壤体积含水量2(swvl2) | 水 | m3·m-3 | Volumetric soil water (layer 2) |
| 土壤体积含水量3(swvl3) | 水 | m3·m-3 | Volumetric soil water (layer 3) |
| 土壤体积含水量4(swvl4) | 水 | m3·m-3 | Volumetric soil water (layer 4) |
| 气温(t2m) | 热 | K | 2 metre temperature |
| 土壤温度1(stl1) | 热 | K | Soil temperature (layer 1) |
| 土壤温度2(stl2) | 热 | K | Soil temperature (layer 2) |
| 土壤温度3(stl3) | 热 | K | Soil temperature (layer 3) |
| 土壤温度4(stl4) | 热 | K | Soil temperature (layer 4) |
| 地表净太阳辐射(ssr) | 热 | J·m-2 | Surface net solar radiation |
| 地表向下太阳辐射(ssrd) | 热 | J·m-2 | Surface solar radiation downwards |
| 地表净热辐射(str) | 热 | J·m-2 | Surface net thermal radiation |
| 地表向下热辐射(strd) | 热 | J·m-2 | Surface thermal radiation downwards |
| 地表潜热通量(slhf) | 热 | J·m-2 | Surface latent heat flux |
| 地表感热通量(sshf) | 热 | J·m-2 | Surface sensible heat flux |
由于数据集中的土壤体积含水量与土壤温度分布于4个深度,本研究以各土层的实际厚度占总深度的比例作为权重,对4个深度的土壤体积含水量(swvl1~swvl4)和土壤温度(stl1~stl4)分别进行了加权平均处理,得到平均土壤体积含水量(swvl)和平均土壤温度(stl)。数据获取自哥白尼气候变化服务中心数据检索系统(
1.1.4 地表覆盖数据和气候分类数据
地表覆盖数据采用了空间分辨率为0.05°的MODIS(Terra+Aqua)全球年度土地覆盖类型产品MCD12C1(V061版本),选用了其中2024年的国际地圈-生物圈计划(IGBP)分类系统,将地表划分为不同的植被功能类型(PFTs),并对其进行重分类,最终确定了林地、草地、湿地、耕地4种植被类型[21]。
1.1.5 数据与预处理
为保证不同产品间时空尺度的精准匹配并满足统一建模的需求,本研究在时间维度上统一提取了2002—2024年的月度数据;在空间维度上,以ERA5-Land数据集的0.1°空间分辨率为基准网格,对其他空间分辨率不一致的数据进行了重采样预处理。采用双线性插值法(Bilinear Interpolation)将LHSIF和TRAX GPP数据由0.05°重采样至0.1°,以最大限度保留原始连续数据的平滑特征;采用最邻近插值法(Nearest Neighbor)将地表覆盖和气候分类数据分别由0.05°和0.083°重采样至0.1°空间分辨率,以避免插值产生不存在的分类代码[24]。
1.2 研究方法
1.2.1 Theil-Sen斜率估计和Mann-Kendall趋势检验
式中:xj 和xi 分别表示第j年和第i年的变量观测值;β为变化趋势的斜率。当β>0时,表明时间序列呈上升趋势;当β<0时,表明呈下降趋势。
式中:n为时间序列的长度;sgn为符号函数。当样本量n≥10时,统计量S近似服从正态分布。其方差Var(S)与最终的标准化检验统计量Z计算如下:
基于斜率β与统计量Z,设定显著性水平α=0.05(即临界值|Z|≥1.96),将年际变化趋势划分为3类:显著上升(β>0且Z≥1.96)、显著下降(β<0且Z≤-1.96)及变化不显著(-1.96<Z<1.96)[29]。计算逐像元的SIF和GPP变化趋势,并将结果与气候类型、植被类型数据进行空间叠加。在全球整体、不同气候类型及不同植被类型3个维度上,采用方差分析(ANOVA)结合Tukey HSD事后多重比较检验,对不同类别的SIF和GPP年际变化速率进行统计分析,并对各类变化趋势的像元占比进行统计与可视化分析。进一步提取SIF显著上升且GPP显著下降的重叠像元,以量化光合生理与碳固定非同步性现象的空间及气候类型分布特征。
1.2.2 随机森林模型构建与SHAP可解释性分析
本研究采用随机森林(Random Forest,RF)回归算法构建多元驱动模型,以有效避免水热驱动因子间的多重共线性对结果的干扰,并引入Shapley加性解释(SHAP)方法进行空间归因,揭示水热因子对全球植被光合与生产力的非线性驱动作用及其空间异质性。
在数据预处理阶段,将长时间序列的水热驱动因子及因变量(SIF与GPP)在时间维度上进行多年均值化处理,实现变量的空间聚合。相较于直接引入时间序列数据的动态建模,时间维度的均值化处理能够有效剥离年际与季节性噪声,其模型结果表征的是长期稳态气候背景与地表环境对全球植被光合与生产力空间分布格局的驱动[30]。在此基础上,提取所有变量均有效且空间匹配的共同像元,避免模型结果中由于空间覆盖度不同而引入的偏差。
采用基于ranger算法的随机森林进行回归建模[31]。为深入探究驱动因子的动态差异,本研究构建了3个层次的随机森林模型框架:首先,基于全球范围内的共同有效像元,分别训练以SIF和GPP为因变量的全局随机森林模型,捕获全球尺度的普适性驱动规律;其次,依据植被类型与气候类型属性,分别提取样本量具有统计学意义的像元子集,训练独立的分层独立模型,以探究不同植被类型和气候类型下的关键驱动因子差异;第三,针对年际变化呈现显著上升与显著下降趋势的像元分别构建模型,以探究导致植被光合和生产力显著增加与减少的主导驱动因子差异。模型的核心超参数设定为:决策树数量(num.trees)为500,分裂节点处候选变量数(mtry)为7,最小节点样本数(min.node.size)为5,最大树深(max.depth)为12,节点分裂规则采用方差缩减(Variance)。以袋外数据的决定系数(Out-of-Bag R2 )和归一化均方根误差(Normalized Root Mean Square Error,NRMSE)作为模型预测精度的评估指标;同时,为降低空间自相关带来的过拟合风险,引入基于10°×10°经纬度网格的5折空间块交叉验证,以检验模型的稳健性与泛化能力。提取模型中基于方差缩减量的特征重要性得分,并将其归一化为相对重要性(即驱动因子的贡献度),以实现各驱动因子的定量排序[32]。
运用基于博弈论的SHAP算法进行逐像元的局部可解释性分析。不同于全局特征重要性评估,SHAP框架依赖于Shapley值的加性特征归因特性,能够量化各因子在像元尺度上对模型预测结果的边际贡献方向及其大小,计算公式如下:
式中:x'为当前像元所有输入特征的集合;z'为x'的任意子集,即不同因子的组合;|x'|和|z'|分别为全集和子集中包含的特征数量;fx(z')为模型以特征子集z'作为输入时的预测值;fx (z'\i)为在相同特征子集中剔除第i个特征后的模型预测值;ϕi 为第i个特征的SHAP值。当ϕi >0时,表明该驱动因子对当前像元的SIF或GPP具有正向促进的边际效应;若ϕi <0,则为抑制效应[33]。
基于多线程并行运算,对逐像元的SHAP拓扑路径进行分布式求解,并通过计算各因子在所有像元上SHAP绝对值的均值,量化各因子在主导全球植被光合与生产力空间格局中的整体重要性程度[34]。该指标从模型预测输出边际贡献的角度,提供了有别于方差缩减特征重要性的互补性依据。此外,对SHAP值与其对应驱动因子的实际值进行依赖关系分析,采用广义相加模型(GAM)拟合非线性响应曲线,并通过定量求解该曲线与零效应线(SHAP=0)的数学交点以提取临界值,以揭示各项水热因子对植被光合与生产力的非线性驱动效应随因子梯度变化的动态规律。
2 结果
2.1 全球植被SIF与GPP年际变化的空间格局
基于Theil-Sen斜率估计与Mann-Kendall趋势检验结果,2002至2024年间全球植被SIF和GPP总体呈上升趋势,但二者变化特征并不完全一致,在不同空间分布、气候类型及植被类型中存在异质性。
全球植被SIF年际变化速率的中位数为5.48×10⁻⁴ mW·m-2·sr-1·nm-1·a-1,介于-3.28×10⁻³~4.45×10⁻³ mW·m-2·sr-1·nm-1·a-1,其中61.49%的区域变化在统计上不显著,而呈显著上升趋势的区域占比(29.88%)远高于显著下降区域占比(8.64%);全球植被GPP年际变化速率中位数为7.5×10⁻³ g·m-2·d-1·a-1(范围为-8.18×10⁻²~9.84×10⁻² g·m-2·d-1·a-1),显著上升和显著下降像元分别占31.07%和21.56%。与SIF相比,GPP显著下降区域占比高12.92个百分点,表明二者在负向变化区域的空间识别上存在差异。空间上,SIF显著上升区域主要分布于东南亚、南亚、欧洲北部、南美部分地区及东亚局部区域,显著下降区域在北美西部、非洲南部和部分干旱区较为集中;GPP显著上升区域在北美东南部、非洲中部、南美东部及东亚部分区域较为连续,而显著下降区域在欧亚大陆中高纬、北美西部、中亚及青藏高原周边较为突出(图1)。
图1
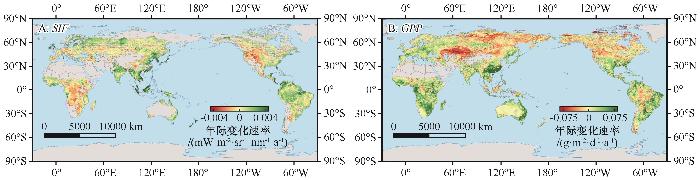
图1
2002—2024年 SIF和GPP年际变化速率的空间分布
Fig.1
Spatial distribution of interannual change in SIF and GPP from 2002 to 2024
图2
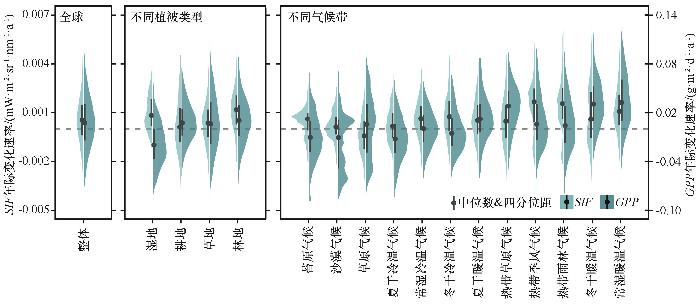
图2
不同植被类型和气候类型下SIF和GPP的年际变化速率
Fig.2
Rates of interannual change in SIF and GPP across different vegetation types and climate zones
图3
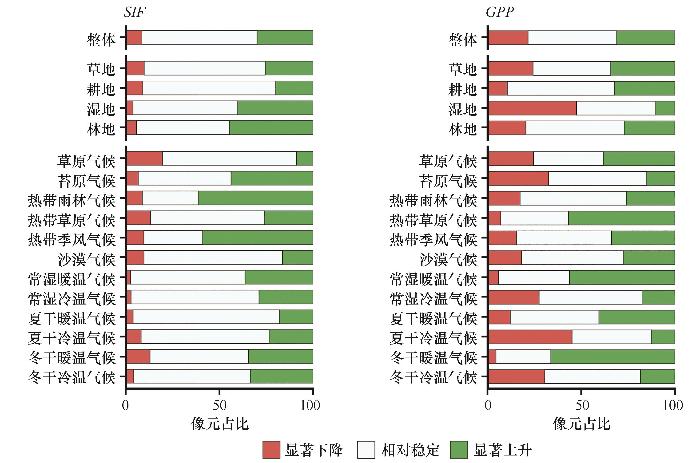
图3
不同植被类型和气候类型下SIF和GPP年际变化趋势的占比
Fig.3
Proportions of interannual trends in SIF and GPP across different vegetation types and climate zones
在气候类型尺度上,SIF上升趋势集中于水热条件较充足的热带和暖湿气候区。热带季风气候、热带雨林气候、常湿暖温气候的SIF变化速率分别为1.67×10⁻³、1.55×10⁻³、1.08×10⁻³ mW·m-2·sr-1·nm-1·a-1,显著上升区域占比分别为58.88%、61.33%、36.28%;相较之下,草原气候SIF变化速率为-4.25×10⁻⁴ mW·m-2·sr-1·nm-1·a-1,显著下降像元占19.56%,为各气候类型中较高水平。GPP的气候类型分布差异表现出更明显的冷区和干旱区负向特征。冬干暖温气候、热带草原气候、常湿暖温气候的GPP显著上升区域占比分别为66.25%、56.85%、56.33%,变化速率分别为3.06×10⁻²、2.82×10⁻²、3.25×10⁻² g·m-2·d-1·a-1;与此相对,夏干冷温气候、苔原气候、冬干冷温气候的GPP显著下降像元占比较高,分别为45.07%、32.62%、30.52%。
为进一步揭示SIF和GPP的时空非同步性,本研究针对性地提取并分析了光合生理信号未能同步转化为碳固定能力(表现为SIF上升而GPP下降)区域的空间特征。在空间分布上,该非同步性区域主要集中于南美洲亚马逊河流域、东南亚群岛以及北美和欧亚大陆的高纬度区域(图1)。从气候类型分布来看,该非同步性现象呈现出向热带湿热区和高纬度冷区两极分化的特征,其中热带雨林气候(21.61%)、苔原气候(18.27%)、热带季风气候(17.12%)和夏干冷温气候(13.11%)的占比最高(表2)。结果表明,在持续的气候变化背景下,极端水热环境(如热带的高温高辐射,或高纬度的热量改善与水分受限)极易出现光合活性提升但碳同化受限的胁迫信号。
表2 不同气候类型下 SIF 显著上升且 GPP 显著下降区域的占比
Table 2
| 气候类型 | 占比 | 气候类型 | 占比 | 气候类型 | 占比 |
|---|---|---|---|---|---|
| 热带雨林气候 | 21.61% | 常湿冷温气候 | 7.17% | 热带草原气候 | 2.87% |
| 苔原气候 | 18.27% | 冬干冷温气候 | 6.65% | 冬干暖温气候 | 2.01% |
| 热带季风气候 | 17.12% | 沙漠气候 | 5.55% | 常湿暖温气候 | 1.81% |
| 夏干冷温气候 | 13.11% | 夏干暖温气候 | 3.19% | 草原气候 | 0.64% |
2.2 全球植被 SIF 与 GPP 的主要水热驱动因素
基于随机森林模型的SHAP可解释性分析结果表明,不同水热驱动因子对全球植被SIF和GPP的相对贡献存在差异(图4)。在驱动SIF空间格局的因子中,热量或辐射因子占据主导地位,累计相对贡献达57.87%,高于水分因子的42.13%;GPP主要由水分供给与交换过程及地表水分状态控制,水分因子累计贡献为55.95%,热量或辐射因子累计贡献为44.05%。从单个因子的重要性来看,在22个驱动因子中,SIF与GPP各自排名前4的因子分别可解释其56.54%和57.95%的变异;其中,SIF含3个热量或辐射因子,GPP则含3个水分因子。尽管总蒸散发同为SIF和GPP贡献度最高的驱动因子,相对贡献分别为20.01%和17.24%,且SHAP值均随总蒸散发的增加表现出整体下降的依赖关系,但SIF的响应曲线呈现出非线性阈值特征,而GPP的响应曲线则更趋近于平滑的近似线性递减。此外,在次要主导因子的差异上,SIF更依赖于地表向下热辐射和气温,而GPP则更依赖于地表储水量和总降水量。
图4
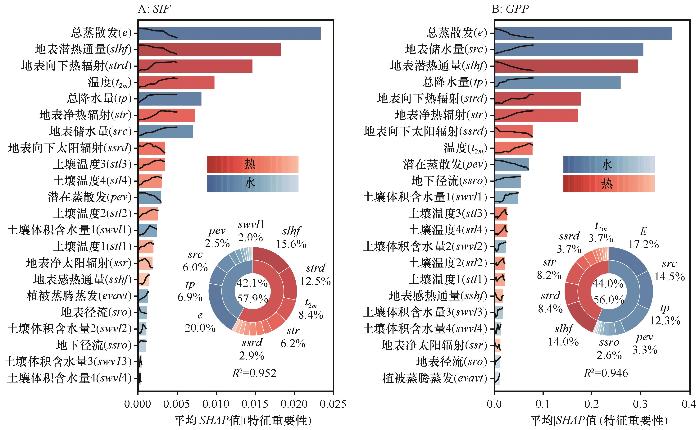
图4
水热驱动因子对SIF和GPP空间异质性的相对贡献
Fig.4
Relative contributions of hydrothermal driving factors to the spatial heterogeneity of SIF and GPP
尽管全球尺度的结果表明SIF和GPP分别受热量或辐射和水分因子的整体控制,但不同分层下的随机森林模型结果表明,SIF和GPP的主导驱动因子在不同的气候类型和植被类型下发生了系统性转换(表3~4)。所有分层模型的NRMSE为0.05~0.17,R²为0.65~0.97,其中87.5%的模型的空间交叉验证R²>0.50,多数模型均保持了较高的拟合度。各气候类型的模型结果显示,地表向下热辐射是冬干冷温、夏干冷温、沙漠及苔原气候类型SIF的主导因子,贡献度为23.8%~32.4%;地表储水量则是热带季风、热带草原、热带雨林气候GPP的主导因子,相对贡献度分别为44.2%、43.1%、29.4%。不同植被类型的模型结果显示,林地、湿地和耕地中SIF与GPP的主导因子一致,林地、湿地和耕地的主导因子分别为总蒸散发、地表向下热辐射和总降水量;而草地中二者的主导因子发生转变,SIF和GPP的主导因子分别为总蒸散发(37.82%)和地表潜热通量(27.43%)。
表3 不同气候类型下 SIF 和 GPP 的主导驱动因子及其贡献度
Table 3
| 气候类型 | 有效像元数(n) | SIF | GPP | ||||||
|---|---|---|---|---|---|---|---|---|---|
| 主导因子 | 主导因子的贡献度 | R2 | CVR2 | 主导因子 | 主导因子的贡献度 | R2 | CV R2 | ||
| 冬干冷温气候 | 52 982 | 地表向下热辐射(strd) | 32.44% | 0.95 | 0.76 | 地下径流(ssro) | 20.64% | 0.92 | 0.78 |
| 冬干暖温气候 | 43 405 | 地表净热辐射(str) | 17.32% | 0.90 | 0.68 | 地表储水量(src) | 40.79% | 0.90 | 0.75 |
| 夏干冷温气候 | 13 510 | 地表向下热辐射(strd) | 27.79% | 0.94 | 0.76 | 地表向下太阳辐射(ssrd) | 33.38% | 0.94 | 0.72 |
| 夏干暖温气候 | 11 606 | 地表净热辐射(str) | 20.72% | 0.89 | 0.62 | 地表储水量(src) | 23.38% | 0.89 | 0.53 |
| 常湿冷温气候 | 219 662 | 总蒸散发(e) | 31.46% | 0.96 | 0.89 | 地表向下热辐射(strd) | 17.22% | 0.87 | 0.66 |
| 常湿暖温气候 | 51 824 | 地表感热通量(sshf) | 19.51% | 0.87 | 0.58 | 地表储水量(src) | 35.06% | 0.90 | 0.66 |
| 沙漠气候 | 22 836 | 地表向下热辐射(strd) | 23.78% | 0.96 | 0.69 | 地表向下热辐射(strd) | 17.07% | 0.92 | 0.28 |
| 热带季风气候 | 32 953 | 地表储水量(src) | 26.23% | 0.82 | 0.34 | 地表储水量(src) | 44.23% | 0.85 | 0.54 |
| 热带草原气候 | 117 187 | 地表储水量(src) | 37.35% | 0.88 | 0.69 | 地表储水量(src) | 43.10% | 0.88 | 0.74 |
| 热带雨林气候 | 43 951 | 地表感热通量(sshf) | 10.86% | 0.65 | 0.09 | 地表储水量(src) | 29.45% | 0.70 | 0.37 |
| 苔原气候 | 27 811 | 总降水量(tp) | 28.93% | 0.95 | 0.87 | 地表向下热辐射(strd) | 24.66% | 0.92 | 0.78 |
| 草原气候 | 105 007 | 地表向下热辐射(strd) | 28.26% | 0.94 | 0.80 | 总蒸散发(e) | 21.95% | 0.90 | 0.67 |
表4 不同植被类型下 SIF 和 GPP 的主导驱动因子及其贡献度
Table 4
| 植被类型 | 有效像 元数(n) | SIF | GPP | ||||||
|---|---|---|---|---|---|---|---|---|---|
| 主导因子 | 主导因子的贡献度 | R2 | CVR2 | 主导因子 | 主导因子的贡献度 | R2 | CV R2 | ||
| 林地 | 194 593 | 总蒸散发(e) | 39.58% | 0.96 | 0.90 | 总蒸散发(e) | 40.18% | 0.97 | 0.95 |
| 湿地 | 5 621 | 地表向下热辐射(strd) | 35.04% | 0.96 | 0.71 | 地表向下热辐射(strd) | 27.36% | 0.90 | 0.71 |
| 耕地 | 99 638 | 总降水量(tp) | 23.66% | 0.92 | 0.76 | 总降水量(tp) | 25.54% | 0.88 | 0.69 |
| 草地 | 442 882 | 总蒸散发(e) | 37.82% | 0.95 | 0.91 | 地表潜热通量(slhf) | 27.43% | 0.93 | 0.86 |
2.3 不同年际变化趋势下关键水热因子的非线性边际效应
为探究导致植被光合与生产力显著变化的驱动机制,本研究针对SIF呈显著上升和显著下降趋势的像元,分别构建了随机森林模型,并解析了各水热因子的SHAP依赖关系。结果表明,关键水热因子对SIF和GPP的边际效应具有高度的非线性特征及明显的阈值效应(图5)。
图5
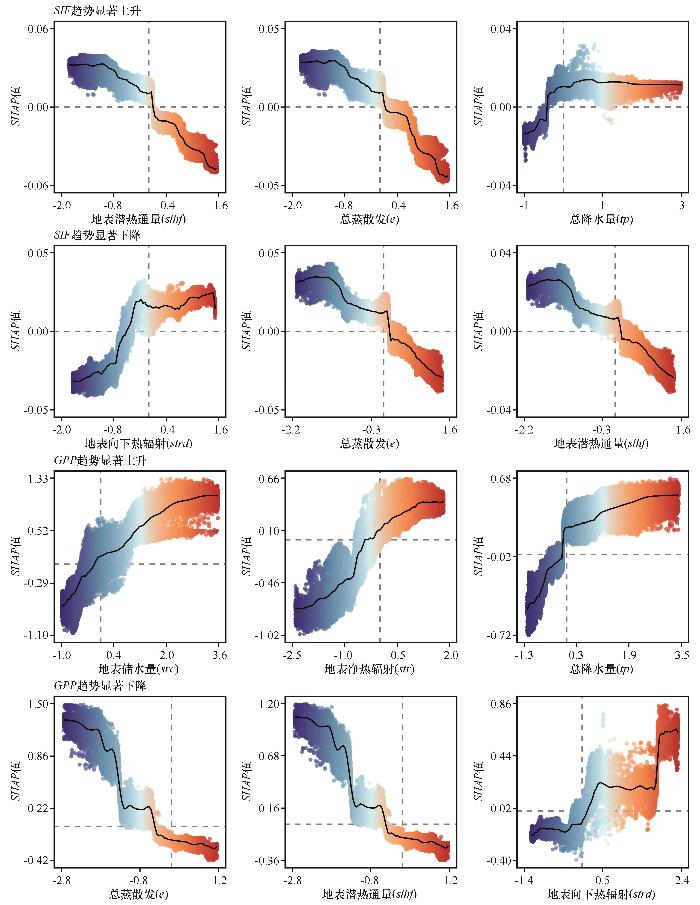
图5
不同变化趋势下关键水热驱动因子对SIF和GPP的局部依赖关系
Fig.5
Partial dependence of SIF and GPP on key hydrothermal driving factors under different variation trends
在SIF呈显著上升趋势的区域,排名前三的主导因子依次为地表潜热通量(slhf)、总蒸散发(e)和总降水量(tp)。由于潜热通量实质上是水分蒸散发过程的能量表现形式,二者的SHAP依赖曲线呈现出高度一致性。具体而言,slhf和e对SIF的贡献呈明显的负向非线性响应,其SHAP值随着slhf和e的增加呈阶段性递减,当二者超过该区域模型特征临界阈值(-4.8×10⁶ J·m-2和-1.9 mm)时,过高的蒸散发和潜热会对局部SIF产生抑制作用。相反,tp则为正向的非线性响应,在降水偏低的区间内,水分补给能迅速解除水分限制,使其对SIF的抑制作用减弱,当降水量越过约2.4 mm的模型特征阈值时,SHAP值由负变正,但随着降水量的进一步增加,其正向驱动作用趋于平缓,边际效应减弱。在SIF呈显著下降趋势的区域,地表向下热辐射(strd)取代水分因子成为解释该区域SIF空间分布格局的主导驱动因子,其次为总蒸散发(e)和地表潜热通量(slhf)。随着strd的增加,其SHAP值大体上呈现递增的响应特征,当strd高于2.5×10⁷ J·m⁻²的统计临界值时,其驱动作用由负向限制转为正向促进,表明在植被光合长期减弱的背景下,较高强度的热辐射输入是维持局部地区较高光合水平的关键要素,且该正向效应在辐射量持续增加后趋于饱和。相比之下,e和slhf的依赖关系曲线虽与显著上升区域的形态相似,但在临界阈值跃变区的负向边际效应更为显著,表明在光合衰减区内植被光合对水分耗散过程具有更高的阈值敏感性。
在GPP呈显著上升趋势的区域,地表储水量(src)、地表净热辐射(str)和总降水量(tp)为最关键的驱动因子组合,且三者的SHAP值均随变量增加而增强,其中src的SHAP变化幅度高达1.7,表明地表储水对GPP增长的敏感性极强。当src、str和tp分别越过0.1 mm、-6.0×10⁶ J·m-2和2.8 mm的模型特征阈值后,SHAP值由负变正,并逐渐增大,表明充足的有效水分输入和净辐射能量是驱动GPP长期增长的关键机制。在GPP呈显著下降趋势的区域,总蒸散发(e)、地表潜热通量(slhf)和地表向下热辐射(strd)成为关键限制因子。e和slhf均呈负向非线性响应,其SHAP值在变量低值区即出现显著的负向边际效应,表明在植被生产力长期退化的区域内,GPP对水分消耗的耐受性极低,即使微弱的蒸散发和潜热增加也会导致原本的正向驱动效应迅速丧失。strd则表现出正向补偿作用,当其超过2.5×10⁷ J·m⁻²的模型特征临界阈值后,其驱动效应由抑制转为促进,且在高辐射区间其正向驱动作用再次迅速增强,表明在水分胁迫主导的GPP长期下降背景下,强辐射成为维持较高植被生产力的核心补偿因子。
3 讨论
3.1 植被光合生理与生产力的时空特征及非同步性机制
尽管整体增长,但GPP显著下降区域明显多于SIF,且出现非同步变化,表明光合生理信号未能等比例转化为碳固定[9]。这种生理活动与碳吸收结果分离的生态表现受水热条件共同控制[35]。辐射和温度为光合作用提供能量基础,并影响光合酶活性、生长季长度、冠层热环境和光系统能量分配[36]。水分条件则通过土壤水分、气孔导度、蒸腾冷却和水分利用效率影响CO₂进入叶片及后续羧化过程[37]。本研究显示,SIF的空间差异更多与热量或辐射因子相关,而GPP更受水分供应和地表水分状态影响。该结果与二者的功能属性一致:SIF首先反映光系统对能量输入和热耗散条件的响应,GPP则更直接受水分条件对气体交换和碳同化过程的约束。由此可见,能量条件决定光合活动的潜在强度,水分条件在很大程度上决定这种潜在强度能否形成稳定的碳固定结果。
这一水分约束并不独立于植被类型和气候背景,而是通过不同植被类型的冠层结构、水分利用策略和区域水热条件表现出来。森林具有较高叶面积指数和复杂冠层结构,其光合活动和碳固定过程均与冠层-大气水汽交换密切相关[2]。本研究中林地SIF和GPP均受总蒸散发的强烈影响,表明森林中蒸散过程同时连接光系统能量调节和植被碳同化。相比之下,耕地对降水输入的依赖更直接,这与农业生态系统较强的水分补给需求和管理背景有关[38]。草地中SIF与GPP主导因子并不完全一致,反映草地生产力对干旱度、土壤水分和植物水力调节特征具有较高敏感性[39]。因此,水分并不是以同一种方式限制所有植被类型,而是通过不同植被的冠层结构、根系分布和水分利用策略改变光合信号向碳固定结果的转化效率。
气候背景进一步决定水分和能量限制的相对重要性。高纬和冷温地区植被生长常受低温和生长季长度限制,气候变暖可在一定程度上延长生长季并增强季节性碳交换[40]。因此,在冷区或能量受限区域,较高的热量输入可能促进光合活动和生产力,但这种促进作用仍受到水分条件和生长季长度的共同约束。干旱、半干旱和季节性缺水区域则更容易受到降水不足、土壤水分缺失和蒸散需求增强的限制[41]。本研究中热带和暖湿气候区SIF上升较明显,而GPP在部分冷区、干旱区及高海拔区域下降更突出,说明热量改善和水分限制在不同气候背景下具有不同生态后果。因此,全球SIF和GPP变化不存在统一的单一驱动机制,而是由区域水热背景与植被功能属性共同决定。
3.2 水热因子驱动作用的非线性解析
蒸散过程在这一机制中具有关键地位。蒸散发同时反映植物水分传输、气孔调节和地表能量分配,是水循环与碳循环相互作用的重要过程[42]。在水分补给充足的情况下,蒸腾冷却和气孔开放有利于维持较高光合效率,光合生理活动更容易转化为碳吸收[45]。当蒸散需求超过水分供应能力时,植被通过降低气孔导度减少水分损失,但这一过程会同步限制CO₂进入叶片并降低GPP[46-47]。尽管总蒸散发在SIF显著上升区和下降区均表现为负向的非线性边际效应,但二者的内在机制有所不同:在SIF上升区,当水分耗散越过临界阈值,植被通过气孔调节等生理响应限制水分散失,引发光合作用的阶段性抑制以避免水力失效;而在SIF下降区,长期环境胁迫致使生态系统缓冲能力退化,植被对水分耗散极为敏感,轻微的蒸散发增加即可打破水分平衡,加剧光合机能受损。这表明水分因子的驱动效应并非单向恒定,而是高度依赖于生态系统的初始稳态。在森林中,这一过程体现为冠层水汽交换对光合和碳吸收的共同控制;而在草地和耕地中,则更多体现为降水补给与蒸散消耗之间的平衡。
3.3 研究的局限性与未来展望
本研究中还存在不足之处。尽管水热条件作为基础环境变量,是驱动陆地生态系统复杂生理过程的基石,明确其主导机制是当前研究的核心环节,但除水热因子外,大气CO₂浓度的动态变化、土壤关键养分(如氮、磷)的有效性,以及植被冠层结构与群落演替等要素,均对植被光系统能量分配和实际碳固定具有重要调节作用。本次研究未能充分量化这些非水热要素的影响。此外,本研究在数据预处理阶段将原始0.05°的LH SIF和GPP数据统一重采样至0.1°,该处理虽然便于多源数据的统一建模,但可能会给空间异质性较高的区域带来潜在的信息损失。未来研究将引入多维因子的高空间分辨率数据,将CO₂浓度、土壤养分循环及植被生物物理属性等关键变量纳入分析框架,以更全面地揭示全球植被光合与生产力动态变化的综合驱动机制。
4 结论
全球植被SIF和GPP在长期演变中存在非同步性。2002—2024年全球植被SIF与GPP总体呈上升趋势,但GPP显著下降的区域占比(21.56%)明显高于SIF(8.64%),尤其在湿地及冷干气候区更为突出,表明部分区域光合生理信号的增强并未等比例地转化为实质的生态系统碳吸收能力。
SIF与GPP的空间格局分别受热辐射与水分条件的异质性主导。能量输入与水分供给在光合碳同化中扮演不同角色:SIF主要受热量或辐射因子控制(相对贡献为57.87%),决定了光合作用的潜在强度;而GPP主要受水分因子控制(相对贡献为55.95%),水分条件制约了潜在光合作用向实际碳同化结果的转化。上述主导驱动因子在不同植被功能类型与区域气候背景下存在系统性转变。
关键水热因子对植被光合与生产力的驱动作用呈现出非线性特征与阈值效应,且在不同的长期变化趋势下表现出非对称性。在长期趋势显著上升区域,SIF的增强主要取决于水分蒸散发跨越阈值后水分限制的有效解除,而GPP的增长则以有效水分输入和净辐射能量作为长期驱动的核心机制;在长期趋势显著下降区域,SIF与GPP均对水分耗散表现出极低的耐受性,此时高强度的热辐射输入成为水分胁迫下维持光合与生产力的关键代偿因子。
参考文献
Terrestrial gross carbon dioxide uptake:global distribution and covariation with climate
[J].
Increased plant growth in the northern high latitudes from 1981 to 1991
[J].
Characteristics,drivers and feedbacks of global greening
[J].
Remote sensing of terrestrial gross primary productivity:a review of advances in theoretical foundation,key parameters and methods
[J].
Remote sensing of solar-induced chlorophyll fluorescence (SIF) in vegetation:50 years of progress
[J].
Solar-induced chlorophyll fluorescence is strongly correlated with terrestrial photosynthesis for a wide variety of biomes:first global analysis based on OCO-2 and flux tower observations
[J].
Model-based analysis of the relationship between sun-induced chlorophyll fluorescence and gross primary production for remote sensing applications
[J].
Recent amplified global gross primary productivity due to temperature increase is offset by reduced productivity due to water constraints
[J].
Large influence of atmospheric vapor pressure deficit on ecosystem production efficiency
[J].
Sun-induced fluorescence as a proxy for primary productivity across vegetation types and climates
[J].
Heatwave breaks down the linearity between sun-induced fluorescence and gross primary production
[J].
LHSIF:the long-term harmonized multi-satellite SIF dataset with a resolution of 0.05° spanning 1995 to 2024
[DS/OL].
Development of the long-term harmonized multi-satellite SIF (LHSIF) dataset at 0.05° resolution (1995-2024)
[J].
TRAX GPP:global 0.05° monthly GPP dataset (2001-2024) derived from a hybrid LSTM framework
[DS/OL].
A global 0.05° gross primary production dataset from 2001 to 2024 generated using a hybrid LSTM framework
[J].
ERA5-land monthly averaged data from 1950 to present
[DS/OL].
MODIS/terra+aqua land cover type yearly L3 global 0.05Deg CMG V061
[DS/OL].
Present and future Köppen-Geiger climate classification maps at 1-km resolution
[DS/OL].
A rank-invariant method of linear and polynomial regression analysis
[J].
Estimates of the regression coefficient based on Kendall’s tau
[J].
Analysis of changes in meteorological variables using mann-kendall and sen's slope estimator statistical tests in Serbia
[J].
Climate-driven increases in global terrestrial net primary production from 1982 to 1999
[J].
ranger:A fast implementation of random forests for high dimensional data in C++ and R
[J].
A unified approach to interpreting model predictions
[J].
From local explanations to global understanding with explainable AI for trees
[J].
Accounting for changes in radiation improves the ability of SIF to track water stress-induced losses in summer GPP in a temperate deciduous forest
[J].
Different responses of solar-induced chlorophyll fluorescence at the red and far-red bands and gross primary productivity to air temperature for winter wheat
[J].
Evidence for the acclimation of ecosystem photosynthesis to soil moisture
[J].
China and India lead in greening of the world through land-use management
[J].
Sensitivity of grassland productivity to aridity controlled by stomatal and xylem regulation
[J].
Enhanced seasonal CO2 exchange caused by amplified plant productivity in northern ecosystems
[J].
Drought-induced reduction in global terrestrial net primary production from 2000 through 2009
[J].
Recent decline in the global land evapotranspiration trend due to limited moisture supply
[J].
Linking chlorophyll a fluorescence to photosynthesis for remote sensing applications:mechanisms and challenges
[J].
Sun-induced fluorescence and gross primary productivity during a heat wave
[J].
Compensatory water effects link yearly global land CO2 sink changes to temperature
[J].
Plant responses to rising vapor pressure deficit
[J].
Increased atmospheric vapor pressure deficit reduces global vegetation growth
[J].

 甘公网安备 62010202000688号


