

0 引言
中国盐碱地分布广泛,面积约为9 913万hm2,约占全球盐碱地总面积的10%[5-7]。盐碱地土壤水分极度失衡,蒸发强烈但含水量低,同时土壤pH和含盐量较高、孔隙度小、结构差[8-9]。此外,盐分持续聚积不仅会破坏土壤团粒结构、降低有机质含量,还可能引发盐尘暴、加剧地下水矿化[10]。因此,盐碱土的治理与利用成为当前亟待解决的关键问题。有研究表明,在光伏电站内部安装太阳能板显著改变了土壤水热条件、地表风速及土壤养分状况[4,11]。杨丽薇等[12]发现,太阳能板的分布显著改变了光伏发电厂区内风速的垂直分布;牛清河等[13]指出电站建设过程中对地表强烈扰动会增强风沙输移强度,进而减少戈壁土壤养分含量。还有研究指出,光伏电站的建设及运维会破坏盐碱地地表结皮和土壤结构,进而产生盐碱粉尘并加剧风蚀[14]。
目前,针对光伏电站的研究多集中于草地和沙漠生态系统,而对盐碱地生态系统中土壤理化性质及微生物群落结构影响的研究相对匮乏,缺乏相关数据和理论支撑。基于此,本研究以武威市民勤县红砂岗200 MW光伏发电基地为研究对象,通过测定与分析光伏电站内外土壤的理化性质、微生物群落结构特征及土壤环境因子对微生物群落结构的影响关系等,旨在揭示光伏电站建设对盐碱地土壤微生物群落及生态环境的影响,为干旱区生态恢复提供理论依据。
1 研究区概况与方法
1.1 研究区概况
研究区位于甘肃省民勤县红砂岗镇,区域海拔约为1 400 m[21],年降水量为110 mm,年蒸发量高达2 644 mm,属于极端干旱区,年日照时数达3 192.3 h,年均气温达9.4 ℃,昼夜温差显著,属于典型的大陆性沙漠气候[22]。地形以沙丘和盆地为主,地势平坦开阔。本研究选用2023年建成投产的武威市民勤县红砂岗200 MW光伏发电基地(38°53′01″N,102°31′57″E)作为研究对象,光伏发电区占地面积344.9 hm2,地下水位较高,土壤盐碱化严重[23]。电站内土壤砂砾含量约86.37%,以荒漠土为主。通过2025年6月调查,发现电站内外植被差异显著,电站内部植被包括白刺(Nitraria tangutorum)、芨芨草(Achnatherum splendens)和梭梭(Haloxylon ammodendron),其中白刺为优势种,植被盖度约为21%;电站外未扰动区域植被则以白刺(Nitraria tangutorum)和梭梭(Haloxylon ammodendron)为主,植被盖度约为14%。
1.2 土壤样品采集
根据光伏板空间布局,在电站中心区域布设采样点,分别在光伏板间(Inter-Panel area,IP)、光伏板檐(Front-edge Panel drip line,FP)和光伏板下(Under-Panel area,UP)位置采集土壤样品;同时在距离光伏电站1 km外、未经人为扰动的自然区域作为对照区域(CK)进行土壤取样,共计4处采样点。在每个采样点开挖深度为20 cm的土壤剖面,设置3个重复,使用取土铲分别采集0~20 cm土层的混合土样。此外,使用100 cm3环刀采集0~10 cm土层深度土壤用于测定土壤容重和含水量。所采集的混合土样中,每份土壤样品中取50 g装入无菌袋并置于液氮恒温箱中转运,后保存于-80 ℃超低温环境以用于土壤微生物多样性测定,剩余混合土样装入自封袋,带回实验室测定其他土壤理化性质[24]。
1.3 土壤理化性质测定
在土壤理化性质的测量中,将100 cm3环刀采集所得土样采用烘干称重法(Oven-drying Method,将土样放入105 ℃烤箱烘烤12 h)测量土壤容重(Soil Bulk Density,BD)和土壤含水率(Soil Water Content,SWC)。将混合土样置于室内,经过自然风干后研磨,过1 mm筛,剔除植物根系和石砾,放入干净容器保存备用。土壤pH值和电导率(Electrical Conductivity,EC)采用电位法(Potentiometric Method,水∶土=5∶1)测定,土壤有机碳(Soil Organic Carbon,SOC)含量通过重铬酸钾外加热法测定,土壤全氮(Soil Total Nitrogen,TN)含量使用凯氏定氮仪法测定,土壤全磷(Soil Total Phosphorus,TP)含量采用钼锑抗比色法测定,土壤全钾(Soil Total Potassium,TK)含量则通过氢氧化钠熔融法测定[25],以上各项指标测定均设置3次重复,以确保数据的可靠性。
1.4 16S rDNA提取与测序
委托广东美格基因科技有限公司测定土壤微生物各项指标。首先采用磁珠法土壤DNA提取试剂盒抽提基因组DNA,并利用Thermo NanoDrop One检测其纯度和浓度。后根据细菌16S V4区引物(515F和806R),使用带barcode的特异引物及TaKaRa Premix Taq® Version 2.0进行PCR扩增,先进行94 ℃预变性5 min,再进行94 ℃变性30 s,52 ℃退火30 s,72 ℃延伸30 s循环30次,最后72 ℃延伸10 min,并进行产物电泳检测。扩增完成后对各PCR产物进行浓度对比并将其混合,之后使用TE缓冲液洗脱并回收目标DNA片段[26],最后严格遵循NEBNext® Ultra™ II DNA Library Prep Kit for Illumina®标准流程构建扩增子文库,并基于Illumina Nova 6000高通量测序平台完成PE250双端测序。序列上传至国际生物技术信息中心(National Center for Biotechnology Information,NCBI)序列读取存档(Sequence Read Archive,SRA)处,获得的登录号为PRJNA1419560。
1.5 数据处理与分析
利用fastp软件对原始读数(Raw Reads)进行滑窗质量控制,并利用cutadapt工具去除引物序列,得到质控后的双端清洁读数(paired-end Clean Reads),然后对Clean Reads进行拼接,得到原始拼接序列(Raw Tags),最后进行质量过滤得到有效的拼接片段(Clean Tags)。基于Clean Tags,采用UPARSE算法在97%相似度水平下进行聚类,生成操作分类单元;利用usearch的sintax模块并基于SILVA数据库获得物种注释信息(置信度阈值默认为0.8),得到最终OTU丰度表(OTU_table)。基于OTU丰度表,进行Alpha多样性分析、物种组成差异分析及环境因子关联分析。使用PICRUSt2软件,通过对比KEGG数据库预测了各样本中KEGG同源基因的相对丰度,以此评估土壤细菌群落的潜在功能。具体操作参照文献[27]。
所有获得的数据使用Excel进行归纳整理,并用Origin和Chiplot软件进行绘图。
2 结果与分析
2.1 光伏电站对盐碱地土壤理化性质的影响
0~20 cm土层各位置间在多个土壤指标上存在显著差异(表1)。不同位置土壤容重差异显著(P<0.05)。FP土壤容重含量最低(0.768 g·cm-3),相比CK(0.954 g·cm-3)降低19.50%。FP、IP和UP土壤含水率相较CK分别提升242.86%、192.86%和132.14%。所有位置的土壤均呈强碱性,pH值为9.03~9.24,差异较小,其中FP最高,相较CK提升1.65%。FP的电导率(35 516.67 μS·cm-1)相较CK(10 170.00 μS·cm⁻1)显著升高(P<0.05),增幅高达249.23%。
表1 0~20 cm土层土壤理化性质
Table 1
| 土壤理化指标 | 采样位置 | |||
|---|---|---|---|---|
| IP | FP | UP | CK | |
| 土壤容重/(g·cm⁻³) | 1.045±0.007a | 0.768±0.013c | 1.037±0.021a | 0.954±0.003b |
| 土壤含水率/% | 7.38±0.05b | 8.64±0.22a | 5.85±0.05c | 2.52±0.01d |
| pH | 9.03±0.07c | 9.24±0.04a | 9.17±0.01ab | 9.09±0.01bc |
| 电导率/(μS·cm⁻1) | 11 436.67±144.49b | 35 516.67±6658.59a | 7 576.67±385.16b | 10 170.00±4198.22b |
| 土壤有机碳/(g·kg⁻1) | 2.42±0.10c | 3.33±0.12b | 5.06±0.04a | 1.87±0.14d |
| 土壤全氮/(g·kg⁻1) | 0.76±0.03b | 0.53±0.02c | 0.87±0.05a | 0.31±0.01d |
| 土壤全磷/(g·kg⁻1) | 0.084±0.001a | 0.085±0.002a | 0.087±0.003a | 0.086±0.002a |
| 土壤全钾/(g·kg⁻1) | 15.10±0.04b | 13.78±0.22c | 37.51±0.11a | 12.14±0.14d |
在土壤养分状况指标中,UP土壤有机碳含量最高(5.06 g·kg-1),相比CK(1.87 g·kg-1)显著提升170.59%(P<0.05)。UP(0.87 g·kg-1)土壤全氮含量较CK(0.31 g·kg-1)增幅达180.65%,IP(0.76 g·kg-1)土壤全氮较CK高出145.16%。UP土壤全钾含量最高(37.51 g·kg-1),相比CK(12.14 g·kg-1)提升208.98%,差异显著(P<0.05)。
2.2 光伏电站对盐碱地土壤微生物多样性的影响
为表明不同采样位置土壤微生物多样性差异,对不同采样点土壤样本中细菌的Alpha多样性指数进行分析。经质控抽平后,所有土壤样品以大于97%相似性聚类共获得OTU总数1 707个,其中IP平均OTU数为1 191个,FP平均OTU数为1 051个,UP平均OTU数为1 397个,CK平均OTU数为1 092个,分别占OTU总数的69.77%、61.57%、80.79%和63.97%(表2)。不同采样位置每个样品的覆盖度均≥99.79%,表明测序结果能够反映样本中绝大多数微生物多样性,结果真实可靠。
表2 0~20 cm土层深度土壤细菌Alpha多样性
Table 2
| 采样位置 | 覆盖率/% | 丰富度指数 | 多样性指数 | ||
|---|---|---|---|---|---|
| OTU数目 | chao1指数 | Shannon指数 | Simpson指数 | ||
| IP | 99.81% | 1 191 | 1 191.9±95.7b | 6.81±0.07b | 0.025±0.004b |
| FP | 99.79% | 1 051 | 1 051.9±88.6c | 5.99±0.04d | 0.040±0.006a |
| UP | 99.85% | 1 379 | 1 379.6±97.4a | 7.50±0.09a | 0.017±0.003c |
| CK | 99.86% | 1 092 | 1 092.7±86.3c | 6.49±0.06c | 0.041±0.007a |
土壤微生物物种丰富度由OTU数目和chao1指数共同反映。UP物种丰富度最高,OTU数目和Chao1指数较CK分别提升26.28%和26.26%(P<0.05)。相比之下,FP物种丰富度则低于CK,OTU数目和Chao1指数分别下降了3.75%和3.73%。土壤微生物物种多样性由Shannon指数和Simpson指数共同表示。UP和IP的Shannon指数较CK分别提升15.56%和4.93%(P<0.05), 而FP的Shannon指数则较CK降低7.70%。数据显示,UP和IP的Simpson指数较CK分别降低58.53%和39.02%,证实其群落多样性较高。FP与CK无显著差异,且指数值偏高。
2.3 光伏电站对盐碱地土壤微生物群落结构的影响
在门水平结构上,各采样点细菌群落结构组成相似,但相对丰度存在差异(图1)。所有土样共检测到细菌27门、79纲、184目、264科、394属、440种。其中相对丰度≥1%的土壤细菌共9门,包括放线菌门(Actinobacteriota)、变形菌门(Proteobacteria)、芽单胞菌门(Gemmatimonadota)、拟杆菌门(Bacteroidota)、绿弯菌门(Chloroflexi)、厚壁菌门(Firmicutes)、疣微菌门(Verrucomicrobiota)、浮霉菌门(Planctomycetota)和髌骨细菌门(Patescibacteria),小于1%的细菌合并为其他。盐碱地光伏电站内外的细菌群落主要由放线菌门(34.59%~41.93%)、变形菌门(17.24%~25.79%)、芽单胞菌门(6.33%~14.06%)、拟杆菌门(5.00%~14.16%)和绿弯菌门(5.63%~10.01%)构成,占总细菌相对丰度的87.40%,属于优势菌门。
图1
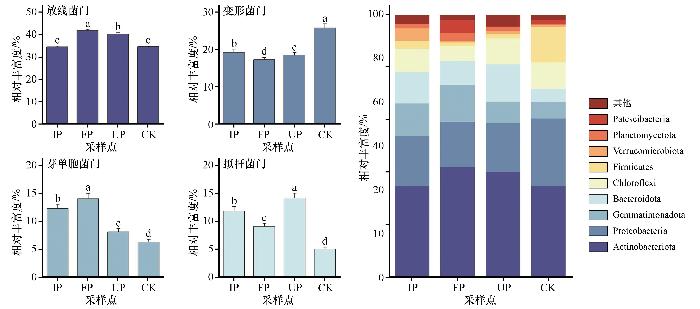
图1
土壤细菌门水平相对丰度及差异
Fig. 1
Relative abundance and variance analysis of soil bacterial phylum levels
各采样点的细菌群落整体结构不同,放线菌门为绝对优势菌门,但其他菌门的相对丰度在各采样点间存在显著差异(P<0.05)。与CK相比,IP土壤芽单胞菌门、拟杆菌门、浮霉菌门和疣微菌门相对丰度分别提升94.62%、136.92%、315.49%和616.70%(P<0.05),而厚壁菌门和髌骨细菌门相对丰度分别降低77.31%和96.10%;FP土壤拟杆菌门、芽单胞菌门、髌骨细菌门和浮霉菌门相对丰度分别提高81.70%、122.06%、201.36%和655.29%,而绿弯菌门和厚壁菌门分别降低3.70%和89.77%;UP土壤疣微菌门、拟杆菌门和浮霉菌门相对丰度分别提升69.68%、183.45%和277.70%,而厚壁菌门和髌骨细菌门分别降低87.46%和89.53%。
如图2所示,属水平相对丰度>0.1%已知分类的物种共有13属,包括芽孢杆菌属(Bacillus)、嗜盐单胞菌属(Halomonas)、鞘氨醇单胞菌属(Sphingomonas)、红色杆菌属(Rubrobacter)、特鲁珀氏菌属(Truepera)、肠球菌属(Enterococcus)、糖霉菌属(Glycomyces)、类芽孢杆菌属(Paenibacillus)、盐孢菌属(Haliangium)、卡塔琳单胞菌属(Catalinimonas)、交替赤杆菌属(Altererythrobacter)、类诺卡氏菌属(Nocardioides)和链霉菌属(Streptomyces),相对丰度分别为0.96%~45.05%、0.39%~51.89%、0.30%~19.61%、0.14%~6.81%、0.04%~6.08%、1.50%~1.92%、0.38%~3.31%、0.50%~2.23%、0.10%~2.49%、0~3.39%、0.03%~2.21%、0.67%~1.19%和0.22%~1.88%。
图2
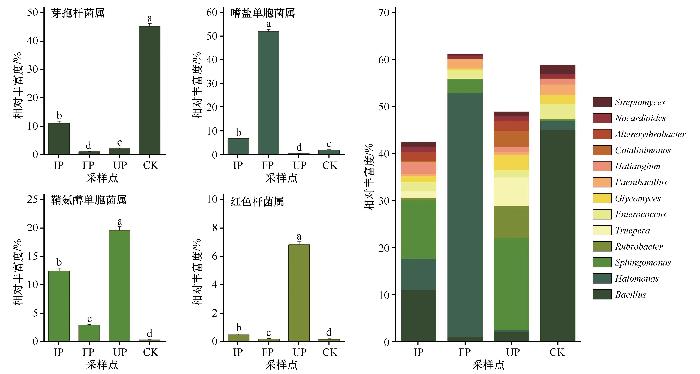
图2
土壤细菌属水平相对丰度及差异
Fig. 2
Relative abundance and variance analysis of soil bacterial genus levels
各采样点主要细菌在属水平上存在较大差异。芽孢杆菌属、肠球菌属、类芽孢杆菌属和链霉菌属相对丰度均在CK最高,IP较CK分别降低75.63%、40.13%、77.58%和55.32%;FP较CK分别降低97.87%、48.59%、11.66%和87.77%;UP较CK分别降低95.52%、52.98%、76.68%和57.98%。嗜盐单胞菌属相对丰度在FP最高,为CK的28.87倍(P<0.01)。UP和IP土壤中鞘氨醇单胞菌属分别为CK的65.83倍和41.16倍,提升极显著(P<0.01)。UP位置红色杆菌属、特鲁珀氏菌属、糖霉菌属和交替赤杆菌属相对丰度分别为CK的47.08倍、138.74倍、1.75、55.91倍,提升极显著(P<0.01)。FP土壤糖霉菌属和交替赤杆菌属相对丰度较CK分别显著降低80.00%和25.00%(P<0.05)。盐孢菌属和类诺卡氏菌属相对丰度均在IP最高,较CK分别提升99.20%和21.43%,FP最低,较CK分别降低92.00%和31.63%。卡塔琳单胞菌属均分布在光伏电站场内。
2.4 光伏电站土壤理化性质对盐碱地土壤微生物群落结构的影响
图3
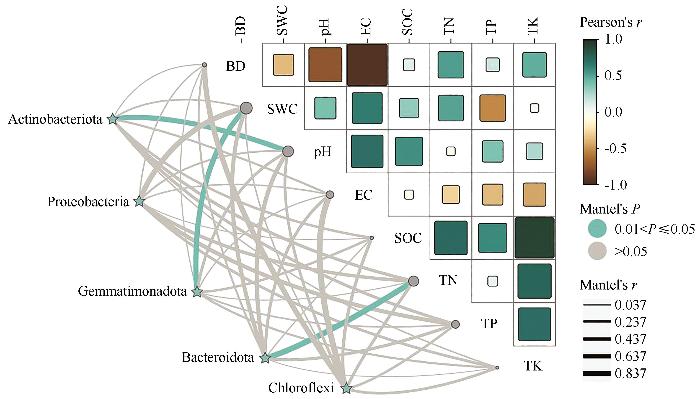
图3
土壤细菌优势菌(门水平)与环境因子间的相关性(Mantel检验)
Fig. 3
Correlations between dominant soil bacteria (phylum level) and environmental factors (Mantel test)
图4
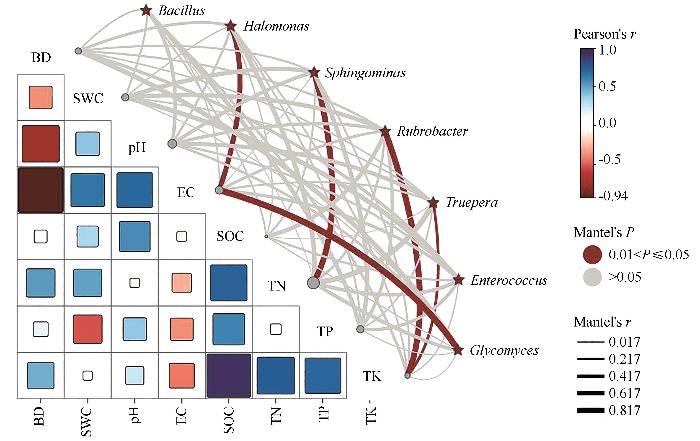
图4
土壤细菌优势菌(属水平)与环境因子间的相关性(Mantel检验)
Fig. 4
Correlation between dominant soil bacteria (genus level) and environmental factors (Mantel test)
2.5 光伏电站盐碱地土壤微生物功能预测
如表3所示,不同采样点的土壤细菌群落功能差异显著(P<0.05)。在一级功能水平上,共鉴定出4种功能,其平均相对丰度依次为新陈代谢(80.88%~81.78%)、遗传信息处理(11.01%~11.56%)、细胞过程(2.95%~3.71%)和环境信息处理(1.44%~1.68%)。新陈代谢为主要功能,环境信息处理功能占比最少。IP细菌新陈代谢功能相对丰度较CK提升0.71%,UP细菌细胞过程基因相对丰度较CK提升4.86%,CK细菌遗传信息处理功能相对丰度均低于其他3个采样点,UP、FP和IP较CK分别提升4.99%、4.57%和3.54%,而CK环境信息处理功能相对丰度则显著高于其他3个采样位置(P<0.05),UP、FP和IP较CK分别降低11.76%、10.02%和14.29%。
表3 0~20 cm土层土壤细菌功能通路相对丰度
Table 3
| 功能 | 采样点相对丰度/% | ||||
|---|---|---|---|---|---|
| 一级功能 | 二级功能 | IP | FP | UP | CK |
| 新陈代谢 | 碳水化合物代谢 | 13.29±0.19c | 13.27±0.18c | 13.47±0.21b | 13.57±0.23a |
| 氨基酸代谢 | 13.04±0.16b | 13.30±0.18a | 13.29±0.19a | 13.32±0.21a | |
| 辅因子和维生素代谢 | 12.36±0.17b | 12.52±0.19a | 12.18±0.16c | 11.87±0.14d | |
| 萜类化合物和聚酮化合物代谢 | 10.23±0.14a | 10.10±0.11b | 10.15±0.11b | 9.54±0.10c | |
| 其他氨基酸代谢 | 7.76±0.13b | 7.59±0.11c | 7.80±0.14b | 8.07±0.17a | |
| 脂质代谢 | 6.70±0.11b | 6.72±0.12b | 7.07±0.14a | 7.06±0.13a | |
| 外源生物降解与代谢 | 5.27±0.11c | 5.85±0.13b | 5.71±0.14b | 6.28±0.16a | |
| 能量代谢 | 5.14±0.13a | 5.01±0.11b | 5.15±0.13a | 4.99±0.10b | |
| 其他次级代谢产物的生物合成 | 2.75±0.08a | 2.50±0.05c | 2.76±0.09a | 2.64±0.06b | |
| 聚糖生物合成与代谢 | 2.66±0.09a | 2.55±0.08b | 2.56±0.08b | 2.26±0.06c | |
| 核苷酸代谢 | 1.66±0.07a | 1.65±0.07a | 1.65±0.07a | 1.60±0.06b | |
| 遗传信息处理 | 复制与修复 | 5.31±0.08a | 5.31±0.08a | 5.25±0.07a | 5.06±0.05b |
| 翻译 | 2.91±0.09a | 2.91±0.09a | 2.82±0.08a | 2.66±0.06b | |
| 折叠、分选与降解 | 3.34±0.11a | 3.29±0.09b | 3.33±0.11a | 3.28±0.09b | |
| 细胞过程 | 细胞运动 | 2.32±0.09a | 2.18±0.08b | 1.60±0.05c | 2.31±0.09a |
| 细胞生长与死亡 | 1.38±0.08a | 1.30±0.07a | 1.35±0.08a | 1.23±0.05b | |
| 环境信息处理 | 膜转运 | 1.49±0.04c | 1.51±0.05b | 1.44±0.04c | 1.68±0.07a |
所有样品共检测到17种二级功能,其中碳水化合物代谢(13.27%~13.57%)、氨基酸代谢(13.04%~13.32%)、辅因子和维生素代谢(11.87%~12.52%)和萜类化合物和聚酮化合物代谢(9.54%~10.23%)为土壤细菌主要二级功能。
IP在萜类化合物和聚酮化合物代谢、聚糖生物合成与代谢、翻译和细胞生长等方面的相对丰度较CK分别提升7.23%、17.70%、9.40%和12.20%,但在外源生物降解与代谢和膜转运等方面相对丰度则低于CK,降幅分别为16.08%和11.31%;FP在萜类化合物和聚酮化合物代谢和聚糖生物合成与代谢的相对丰度较CK分别提升5.87%和12.83%,但在外源生物降解与代谢和膜转运等方面的相对丰度均低于CK,分别降低6.85%和10.12%;UP在聚糖生物合成与代谢和翻译等方面的相对丰度较CK分别提升13.27%和6.02%,但在细胞运动和膜转运等方面的相对丰度则显著低于CK(P<0.05),降幅分别为30.74%和14.29%。
3 讨论
3.1 光伏电站对盐碱地土壤理化性质的影响
土壤是植物生长的主要载体,其理化性质是评价土壤肥力的重要指标[28]。本研究发现,光伏电站的建设显著改变了盐碱地表层土壤理化性质的空间分布格局。
FP在土壤物理结构与盐分聚积方面特征显著。该样点土壤容重(0.768 g·cm⁻³)最低,较CK(0.954 g·cm⁻³)显著降低19.50%,表明该处土壤疏松多孔;同时FP土壤pH和电导率均高于CK,其电导率高达35 516.67 μS·cm-1,较CK(10 170.00 μS·cm-1)显著上升249.23%,说明该区域可溶性盐分明显聚积,盐碱化程度加剧,该结果与Luo等[29]研究一致。FP位置盐分显著聚积主要与光伏板结构改变水盐运移路径有关。该处汇集较多降水和露水,溶解了土壤中的盐分;同时该区域又暴露于强蒸发环境,水分被大量蒸发,而被溶解的盐分则滞留于表土[30]。此外,当地降水量少,淋洗作用微弱,进一步加剧了盐分在土壤表层的聚积。
UP则在土壤养分积累方面表现突出。研究发现UP土壤有机碳含量(5.06 g·kg-1)较CK(1.87 g·kg-1)增加170.59%,全氮和全钾含量分别是CK的2.81倍和3.09倍。这种养分的显著富集,主要与UP植被覆盖度较高、凋落物输入量大及微生物活动活跃有关。光伏板的遮阴效应有效减少了地表的太阳直射,降低风速与水分蒸发,维持相对稳定的温湿度,显著抑制盐分聚积,从而为植被生长与微生物活动创造了有利环境[31],促进了土壤有机质和养分循环,土壤肥力逐步提升。尽管有研究指出,建设光伏电站会导致土壤养分随年限增加或空间位置有所下降[32-34],但本研究在建站两年的电站中仍观察到UP位置养分富集现象。
3.2 光伏电站对盐碱地土壤微生物群落特征的影响
本研究Alpha多样性分析表明,不同采样点土壤细菌多样性差异显著。UP采样点物种丰富度和群落多样性均显著高于CK,增幅分别为26.27%和37.05%,FP则低于CK,这表明UP物种分布更均匀,群落结构更稳定复杂。这种差异主要源于不同生境的土壤养分条件不同,UP土壤含水率较高,营养物质相对丰富,有利于土壤细菌的生存繁衍;相反,FP盐碱化程度较高,土壤盐分胁迫较强,导致部分敏感土壤微生物类群流失,降低了其丰富度和多样性。
3.3 盐碱地土壤理化性质对土壤微生物群落特征的影响
在属水平上,嗜盐单胞菌属与电导率呈显著正相关,进一步表明其作为典型耐盐碱菌群的生态功能,这与陈英松等[59]研究结果一致。相反,糖霉菌属与电导率呈显著负相关,且在盐碱化程度最高的FP处含量最少,说明高盐分环境明显抑制其生长。红色杆菌属和特鲁珀氏菌属作为耐盐碱、耐干旱菌群,与全钾呈显著正相关,表明其不仅能够适应盐碱胁迫环境,还具备独特的钾利用或代谢策略,从而在相应生境中获得竞争优势。
3.4 光伏电站对盐碱地土壤细菌功能影响
本研究表明不同采样位置的土壤细菌功能存在显著差异。在一级功能水平上,新陈代谢在各样本中均占主导地位,占比高达80%以上,说明微生物群落以物质与能量代谢为主,这与孔晨晨等[61]的研究结论一致。而CK环境信息处理功能显著高于电站内各采样点,表明未经人为干扰土壤的微生物群落可能对环境变化更为敏感。
在二级功能层面,碳水化合物代谢和氨基酸代谢在各细菌群落中均占优势地位,这与李卓然等[45]对其他盐碱地的研究结果一致。通过进一步比较发现,电站内各采样点与CK在代谢功能层面差异显著。与CK相比,IP、FP和UP在聚糖生物合成与代谢方面均显著增强,增幅分别为17.70%、12.83%和13.27%;同时,电站内部土壤细菌的部分传输与运动功能呈现下降趋势,IP的外源生物降解与代谢功能降低16.08%,FP的膜转运功能降低10.12%,UP的细胞运动功能降幅高达30.74%,这些土壤细菌功能的变化表明,建设光伏电站使盐碱地土壤形成了营养物质显著提升但物理结构受限的微环境,重塑了土壤细菌整体功能分布。光伏板覆盖通过遮阴汇水效应,减少水分蒸发,促进养分富集,从而提升了其新陈代谢功能,而盐分在局部聚积则抑制部分细菌的膜转运功能;同时,建设光伏电站引起土壤板结或存在潜在的重金属污染,会对细胞结构造成破坏,从而降低细菌的细胞运动功能。
4 结论
本研究系统评估了光伏电站建设与运营对盐碱地土壤环境的影响。微生物分析显示,电站内部IP和UP区域的物种丰富度和多样性均显著提高,芽单胞菌门、拟杆菌门、浮霉菌门的相对丰度均高于场外。土壤pH、电导率、土壤含水率和土壤全氮是驱动盐碱地土壤微生物群落结构变化的主要环境因子。功能预测显示,土壤细菌群落的核心功能为新陈代谢,主要包括碳水化合物代谢、氨基酸代谢、辅因子和维生素代谢等二级功能。电站内部土壤含水率、有机碳、全氮及全钾含量均显著提升,其中UP位置较CK分别提升132.14%、170.59%、180.65%和208.98%,且UP中鞘氨醇单胞菌属、红色杆菌属等细菌富集。
为系统揭示光伏电站生态效应的时间动态特征,未来需开展多季节,多年份连续监测,构建光伏+植被+微生物协同修复模式,制定针对性生态调控策略,推动光伏发电与生态系统恢复的协同可持续发展。
参考文献
Gain tuned sliding mode control based maximum power point tracking for solar pv systems
[J].
Mechanisms of plant saline-alkaline tolerance
[J].
Salt tolerance mechanisms of plants
[J].
Solar photovoltaic panels significantly promote vegetation recovery by modifying the soil surface microhabitats in an arid sandy ecosystem
[J].
Stability and carbon uptake of the soil microbial community is determined by differences between rhizosphere and bulk soil
[J].
Soil nutrients,enzyme activities,and microbial communities along a chronosequence of chinese fir plantations in subtropical China
[J].
Environmental impacts of photovoltaic power plants in Northwest China
[J].
光伏建设对草原矿区复垦土壤微生物群落的影响
[J/OL].
Soil inoculation with symbiotic microorganisms promotes plant growth and nutrient transporter genes expression in durum wheat
[J].
Relative importance of soil properties and microbial community for soil functionality:insights from a microbial swap experiment
[J].
柴达木盆地盐渍土植物根际促生嗜盐单胞菌Halomonas elongata CR-1的分离及其全基因组分析
[J/OL].
The microbial engines that drive earth's biogeochemical cycles
[J].

 甘公网安备 62010202000688号


