Hierarchy of responses to resource pulses in arid and semi-arid ecosystems
2
2004
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
Modifying the 'pulse-reserve' paradigm for deserts of North America:precipitation pulses,soil water,and plant responses
2
2004
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
Let the concept of trait be functional
1
2007
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
The worldwide leaf economics spectrum
4
2004
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... [
4,
6,
14-
15].
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 叶片资源获取与资源保守权衡的核心是植物在碳收益、组织建成成本、叶片寿命和抗脱水能力之间进行资源配置的结果.在叶片经济谱框架下,较高的比叶面积、叶氮含量和光合速率通常代表快速资源获取策略,低比叶面积、较高叶质量面积和叶干物质含量、较厚叶片和较高组织密度通常代表资源保守策略[4,33].因此,叶片资源获取与资源保守权衡的本质,是快速碳回报与长期组织维持之间的取舍,前者有利于提高短期生产力,后者有利于提高长期存活概率. ...
From tropics to tundra:Global convergence in plant functioning
4
1997
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
... 荒漠植物功能性状权衡的生态适应意义,不仅在于说明某些性状如何响应干旱、高温或盐分胁迫,更重要的是揭示植物如何在有限资源条件下实现水分获取、碳同化、组织保护、长期存活和群落维持之间的平衡[5-7].与单一性状评价相比,权衡视角能够把叶片经济性状、根系资源获取性状、水力安全性状和碳储存性状联系起来,解释荒漠植物从个体抗旱到群落构建、从气候变化响应到植被恢复应用的连续生态过程. ...
河西走廊荒漠植物优势种叶片功能性状变异及权衡
7
2025
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... 荒漠植物长期处于水分亏缺、土壤贫瘠、高温强光、盐分胁迫和风沙扰动等复合环境中,其生态适应是由叶片、根系、茎干水力和碳分配储存等多类功能性状共同决定.叶片性状主要反映植物在光合碳获取、蒸腾耗水、养分投资和组织保护之间的协调关系;根系性状体现植物对土壤水分和养分空间异质性的适应;茎干结构和水力性状连接水分运输效率与抗栓塞安全性,是维持气孔调节、光合碳同化和干旱存活的重要基础;碳分配与储存性状则反映植物在当前生长、抗旱维持和复水恢复之间的资源配置方式.与湿润或半湿润地区植物相比,荒漠植物功能性状研究更关注植物如何在有限水分和短暂资源窗口中实现碳获取、水分保存、养分吸收、抗旱维持和复水恢复[6,10](表1). ...
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
Plant responses to precipitation in desert ecosystems:integrating functional types,pulses,thresholds,and delays
5
2004
... 水力效率与水力安全权衡的机制基础,在于木质部和叶片水力系统同时承担快速输水和避免栓塞两种功能.较大的导管直径、较高的导管连通性和叶片水力导度,有利于提高单位时间内的水分运输能力,从而维持气孔开放、蒸腾冷却和光合碳同化,使植物在水分条件改善时获得较高生长收益.然而,当土壤水分下降、大气蒸汽压亏缺升高时,木质部张力增强,大导管和高连通性结构更容易发生气穴形成和栓塞扩展,进而增加水力失败风险.相反,较小导管、较高导管密度、较厚导管壁、较高木材密度和较强抗栓塞能力,能够降低栓塞风险,使P50和P88更负、水力安全边际增大,但通常以降低导水效率、蒸腾通量和快速生长潜力为代价[7,44-46]. ...
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
... 荒漠植物功能性状权衡的生态适应意义,不仅在于说明某些性状如何响应干旱、高温或盐分胁迫,更重要的是揭示植物如何在有限资源条件下实现水分获取、碳同化、组织保护、长期存活和群落维持之间的平衡[5-7].与单一性状评价相比,权衡视角能够把叶片经济性状、根系资源获取性状、水力安全性状和碳储存性状联系起来,解释荒漠植物从个体抗旱到群落构建、从气候变化响应到植被恢复应用的连续生态过程. ...
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
... -7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
Convergence across biomes to a common rain-use efficiency
1
2004
... 光合碳获取与蒸腾失水权衡的核心是气孔调节.气孔开放有利于CO₂进入叶片,提高净光合速率和碳同化能力,但同时会增加蒸腾耗水、加剧叶水势下降并提高木质部张力;气孔关闭能够减少水分损失、维持较高水力安全性,却会限制CO₂吸收和碳输入[30,50].水分利用效率WUE常被用于评价光合与蒸腾关系,但在干旱荒漠环境中需谨慎解释.较高水分利用效率可能表明植物在保持较高光合速率的同时有效控制蒸腾,也可能只是强干旱下气孔关闭导致蒸腾下降幅度大于光合下降,并不一定意味着适应性增强[8].不同光合途径、水源利用方式和水力策略会改变这一权衡.研究表明,C4和CAM植物通常能够以较低气孔导度维持较高碳收益,或通过昼夜气孔开放差异减少白天失水;C3荒漠植物则更多依靠深根取水、叶片退化、落叶避旱、气孔敏感关闭和较强水力安全性维持碳水平衡[51].因此,光合与蒸腾权衡并非单独由叶片气孔决定,而是根、茎、叶连续体共同调控的结果.这一认识提示,在评价荒漠植物水分利用效率时,不能简单将高WUE等同于高适应性,而应同步分析净光合速率、气孔导度、蒸腾速率、叶水势、叶片水力导度和实际生长表现.若根系能够持续供水、茎干导水能力较强且水力安全边际较大,较高气孔开放可转化为较高碳收益;若土壤快速干化或叶水势接近栓塞阈值,及时关闭气孔则成为避免水力失败的关键保护机制. ...
Plant competition,temporal niches and implications for productivity and adaptability to climate change in water-limited environments
3
2013
... 荒漠生态系统是全球干旱区的重要组成部分,其植被稀疏、生产力较低,植物长期面临水分短缺、高温强光、土壤养分贫瘠、盐分胁迫和风沙扰动等多重环境压力[1].在这种资源受限环境中,植物无法同时充分发挥生长、繁殖、防御、储存和抗逆等功能,而必须通过不同功能性状之间的协调与取舍实现生存[2].植物功能性状是影响植物生长、存活和繁殖,并反映植物对环境响应及生态系统功能作用的形态、生理、物候、解剖和化学属性[3].全球叶片经济谱研究表明,植物叶片性状沿快速投资—快速回报到缓慢投资—长期保守的连续轴变化,体现了植物资源获取与资源保守之间的基本权衡[4-5].荒漠植物性状权衡研究的关键在于将叶片经济谱、根系经济空间、水力安全和碳储存等不同理论维度整合起来,解释植物如何在水分限制、资源脉冲和长期生存风险之间形成可重复的生态策略.近年来,在典型干旱区的研究显示,荒漠植物叶片、根系和水力性状在不同生活型、降水梯度和水盐条件下表现出明显差异[6-9].一方面,干旱环境要求植物降低蒸腾失水、增强水力安全和提高组织寿命;另一方面,降水脉冲和短暂资源窗口又要求植物能够快速吸收水分、恢复光合作用并完成生长繁殖.荒漠植物往往在资源获取与资源保守、水力效率与水力安全、光合获碳与蒸腾失水、地上生长与地下投入,以及生长、防御与储存等权衡轴上形成差异化策略. ...
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
Variations and driving factors of leaf functional traits in the dominant desert plant species along an environmental gradient in the drylands of China
4
2023
... 荒漠植物长期处于水分亏缺、土壤贫瘠、高温强光、盐分胁迫和风沙扰动等复合环境中,其生态适应是由叶片、根系、茎干水力和碳分配储存等多类功能性状共同决定.叶片性状主要反映植物在光合碳获取、蒸腾耗水、养分投资和组织保护之间的协调关系;根系性状体现植物对土壤水分和养分空间异质性的适应;茎干结构和水力性状连接水分运输效率与抗栓塞安全性,是维持气孔调节、光合碳同化和干旱存活的重要基础;碳分配与储存性状则反映植物在当前生长、抗旱维持和复水恢复之间的资源配置方式.与湿润或半湿润地区植物相比,荒漠植物功能性状研究更关注植物如何在有限水分和短暂资源窗口中实现碳获取、水分保存、养分吸收、抗旱维持和复水恢复[6,10](表1). ...
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
TRY plant trait database-enhanced coverage and open access
2
2020
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... [
11,
18].
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
The global spectrum of plant form and function
2
2016
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 功能性状权衡有助于从整株水平解释荒漠植物的抗旱适应.抗旱能力并非由某个耐旱性状决定,而是由水分获取、蒸腾控制、水力安全、碳同化、防御投入和复水恢复等过程共同塑造.叶片获取与保守轴决定碳收益和组织保护,根系水分与养分轴决定资源来源和地下投入,水力效率与安全轴决定水分运输能力和死亡风险,生长、防御与储存轴决定干旱维持和复水恢复能力.深根和二型根系可利用深层土壤水或地下水,提高长期干旱阶段的水分供应稳定性,但需要较高地下碳投入[12,17];较高水力效率可支持蒸腾冷却和光合碳获取,但在强干旱和高蒸汽压亏缺条件下可能增加栓塞风险;较高水力安全性可降低水力失败概率,却可能限制导水能力和生长速率[19,22].干旱期间,植物通常降低快速生长投入,将更多资源用于渗透调节、抗氧化防御、结构保护和NSC储存;复水后,已有碳储备又可支持根系活力恢复、气孔重新开放、木质部功能修复和新叶形成.不同性状组合进一步形成避旱型、耐旱型、保守维持型和恢复型等策略,决定植物在持续干旱、降水脉冲和再干旱循环中的生存概率与恢复速度.因此,抗旱适应不应被理解为某一性状越强越好,而应理解为不同功能模块在特定环境和生活史条件下形成的最优组合. ...
The world-wide "fast-slow" plant economics spectrum:a traits manifesto
1
2014
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
A handbook of protocols for standardised and easy measurement of plant functional traits worldwide
1
2003
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
New handbook for standardised measurement of plant functional traits worldwide
1
2013
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Towards a multidimensional root trait framework:a tree root review
2
2016
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
Root distribution of three dominant desert shrubs and their water uptake dynamics
5
2016
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 荒漠降水多呈脉冲式发生,表层土壤在降水后短时间内水分可利用性较高,同时氮、磷、有机质和微生物活性也相对集中,但表层水分蒸发快、持续时间短;深层土壤水或地下水受短期气候波动影响较小,可在长期干旱阶段为植物提供相对稳定的水源,但深层土壤养分含量低,根系向深层延伸需要较高的碳建成和维持成本[17,39-41].因此,荒漠植物必须在浅层快速获取水分和养分与深层稳定获取水源之间进行空间配置和资源权衡. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
... [17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
... 功能性状权衡有助于从整株水平解释荒漠植物的抗旱适应.抗旱能力并非由某个耐旱性状决定,而是由水分获取、蒸腾控制、水力安全、碳同化、防御投入和复水恢复等过程共同塑造.叶片获取与保守轴决定碳收益和组织保护,根系水分与养分轴决定资源来源和地下投入,水力效率与安全轴决定水分运输能力和死亡风险,生长、防御与储存轴决定干旱维持和复水恢复能力.深根和二型根系可利用深层土壤水或地下水,提高长期干旱阶段的水分供应稳定性,但需要较高地下碳投入[12,17];较高水力效率可支持蒸腾冷却和光合碳获取,但在强干旱和高蒸汽压亏缺条件下可能增加栓塞风险;较高水力安全性可降低水力失败概率,却可能限制导水能力和生长速率[19,22].干旱期间,植物通常降低快速生长投入,将更多资源用于渗透调节、抗氧化防御、结构保护和NSC储存;复水后,已有碳储备又可支持根系活力恢复、气孔重新开放、木质部功能修复和新叶形成.不同性状组合进一步形成避旱型、耐旱型、保守维持型和恢复型等策略,决定植物在持续干旱、降水脉冲和再干旱循环中的生存概率与恢复速度.因此,抗旱适应不应被理解为某一性状越强越好,而应理解为不同功能模块在特定环境和生活史条件下形成的最优组合. ...
Intraspecific variation in fine-root traits is larger than in aboveground traits in European herbaceous species regardless of drought
1
2024
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Vulnerability of xylem to cavitation and embolism
2
1989
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 功能性状权衡有助于从整株水平解释荒漠植物的抗旱适应.抗旱能力并非由某个耐旱性状决定,而是由水分获取、蒸腾控制、水力安全、碳同化、防御投入和复水恢复等过程共同塑造.叶片获取与保守轴决定碳收益和组织保护,根系水分与养分轴决定资源来源和地下投入,水力效率与安全轴决定水分运输能力和死亡风险,生长、防御与储存轴决定干旱维持和复水恢复能力.深根和二型根系可利用深层土壤水或地下水,提高长期干旱阶段的水分供应稳定性,但需要较高地下碳投入[12,17];较高水力效率可支持蒸腾冷却和光合碳获取,但在强干旱和高蒸汽压亏缺条件下可能增加栓塞风险;较高水力安全性可降低水力失败概率,却可能限制导水能力和生长速率[19,22].干旱期间,植物通常降低快速生长投入,将更多资源用于渗透调节、抗氧化防御、结构保护和NSC储存;复水后,已有碳储备又可支持根系活力恢复、气孔重新开放、木质部功能修复和新叶形成.不同性状组合进一步形成避旱型、耐旱型、保守维持型和恢复型等策略,决定植物在持续干旱、降水脉冲和再干旱循环中的生存概率与恢复速度.因此,抗旱适应不应被理解为某一性状越强越好,而应理解为不同功能模块在特定环境和生活史条件下形成的最优组合. ...
Xylem hydraulic safety margins in woody plants:coordination of stomatal control of xylem tension with hydraulic capacitance
1
2009
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
Xylem anatomical structure as a determinant of hydraulic trait variation in C3 plant Reaumuria soongorica and C4 plant Salsola passerina
1
2025
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Characteristics,relationships,and anatomical basis of leaf hydraulic traits and economic traits in temperate desert shrub species
3
2024
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
... 功能性状权衡有助于从整株水平解释荒漠植物的抗旱适应.抗旱能力并非由某个耐旱性状决定,而是由水分获取、蒸腾控制、水力安全、碳同化、防御投入和复水恢复等过程共同塑造.叶片获取与保守轴决定碳收益和组织保护,根系水分与养分轴决定资源来源和地下投入,水力效率与安全轴决定水分运输能力和死亡风险,生长、防御与储存轴决定干旱维持和复水恢复能力.深根和二型根系可利用深层土壤水或地下水,提高长期干旱阶段的水分供应稳定性,但需要较高地下碳投入[12,17];较高水力效率可支持蒸腾冷却和光合碳获取,但在强干旱和高蒸汽压亏缺条件下可能增加栓塞风险;较高水力安全性可降低水力失败概率,却可能限制导水能力和生长速率[19,22].干旱期间,植物通常降低快速生长投入,将更多资源用于渗透调节、抗氧化防御、结构保护和NSC储存;复水后,已有碳储备又可支持根系活力恢复、气孔重新开放、木质部功能修复和新叶形成.不同性状组合进一步形成避旱型、耐旱型、保守维持型和恢复型等策略,决定植物在持续干旱、降水脉冲和再干旱循环中的生存概率与恢复速度.因此,抗旱适应不应被理解为某一性状越强越好,而应理解为不同功能模块在特定环境和生活史条件下形成的最优组合. ...
Functional xylem characteristics associated with drought-induced embolism in angiosperms
1
2022
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
Hydraulic trade-off and coordination strategies mediated by leaf functional traits of desert shrubs
0
2022
Weak tradeoff between xylem safety and xylem-specific hydraulic efficiency across the world's woody plant species
1
2016
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Drought effect on plant biomass allocation:a meta-analysis
1
2017
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Plants extend root deeper rather than increase root biomass triggered by critical age and soil water depletion
1
2024
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
Non-structural carbohydrate dynamics associated with antecedent stem water potential and air temperature in a dominant desert shrub
2
2020
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
Carbohydrate allocation strategies in leaves of dominant desert shrubs in response to precipitation variability
3
2025
... Functional trait and their ecological significance in desert plants
Table 1| 功能性状类别 | 主要性状指标 | 生态功能及荒漠适应意义 |
|---|
| 叶片形态性状 | 叶面积、叶厚度、比叶面积(SLA)、叶质量面积(LMA)、叶干物质含量(LDMC)、叶组织密度、叶片肉质化程度 | 反映叶片资源获取、建成成本、寿命和抗脱水能力[4,11];小叶、厚叶、高LMA和高LDMC有利于节水抗逆,较高SLA则利于快速获碳和利用降水脉冲[12-13] |
| 叶片生理性状 | 净光合速率(Pn)、气孔密度、气孔大小、气孔导度(Gs)、蒸腾速率(Tr)、胞间CO₂浓度、水分利用效率(WUE)、叶绿素含量、叶片温度 | 表征光合获碳、蒸腾耗水、气孔调节和水分利用效率;较高光合速率利于短期碳积累,较强气孔调节和较高WUE有助于维持干旱下碳—水平衡 |
| 叶片化学计量性状 | 叶碳、氮、磷含量,C:N、C:P、N:P,叶片可溶性糖、脯氨酸、抗氧化酶活性 | 反映养分投资、光合潜力及抗逆防御能力;较高叶氮、叶磷利于光合提升,渗透调节物质和抗氧化系统有助于抵御干旱、高盐和强辐射胁迫[4,6,14-15]. |
| 根系构型性状 | 根深、最大根系深度、根冠比、根长密度(RLD)、根系水平扩展范围、浅层根与深层根比例、二型根系特征 | 决定不同土层水分和养分获取能力;深根利于稳定利用深层水源,浅根利于快速响应降水脉冲,二型根系兼具表层资源利用和深层取水优势[16-17]. |
| 细根经济性状 | 比根长(SRL)、比根面积(SRA)、细根直径、根组织密度(RTD)、根干物质含量、细根寿命、细根周转速率 | 表征根系吸收效率、建成成本和资源周转;高SRL、高SRA利于快速捕获水分和养分热点,高RTD及较长细根寿命有助于长期维持[11,18]. |
| 茎干结构性状 | 木材密度、导管直径、导管密度、导管壁厚、导管连通性、边材面积、木质部解剖结构 | 决定水分运输、机械支持和抗栓塞能力;大导管利于提高水力效率和生长潜力,小导管、高木材密度和厚导管壁则增强水力安全和长期存活[19-21]. |
| 水力功能性状 | 木质部导水率、边材比导率、叶片水力导度、根水力导度、叶水势、枝水势、膨压丧失点、木质部导水率损失50%时的水势(P50)、木质部导水率损失88%时的水势(P88)、水力安全边际、气孔关闭阈值 | 表征水分运输、抗栓塞、气孔调节和干旱死亡风险;高水力效率利于水分改善时快速获碳,高水力安全性则降低长期干旱和高VPD下的水力失败风险[22-25]. |
| 生物量分配性状 | 地上生物量、地下生物量、根冠比、叶生物量比例、茎生物量比例、根生物量比例、繁殖分配比例 | 反映光合产物在获碳、取水、支撑、繁殖和储存间的分配;地下投入利于稳定获取水分养分,地上投入则利于短期生产和快速更新[26-27]. |
| 碳储存性状 | 非结构性碳水化合物(NSC)含量、可溶性糖、淀粉、不同器官NSC分配、结构性碳投入、碳储备动员速率 | 维持干旱期代谢、渗透调节、防御修复和复水后生长;可溶性糖利于渗透调节和细胞保护,淀粉则支持持续干旱与复水阶段的呼吸维持、器官再生和水力修复[28-29]. |
荒漠植物功能性状能够决定资源获取与利用效率,支撑抗旱维持和水力安全,并调节干旱后的复水恢复能力.但这些功能并非彼此独立实现,在资源限制环境中,增强某一功能往往意味着在另一功能上付出代价,因此需要进一步从权衡视角理解不同性状之间的协调、制约和补偿关系.与湿润地区植物相比,荒漠植物的性状组合更突出安全性、保守性和恢复性,但在降水脉冲条件下又必须保留一定快速响应能力.因而,荒漠植物适应性的关键不在于单一性状达到极端值,而在于不同性状在环境波动中形成动态平衡. ...
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
... [29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
7种荒漠木本植物枝干与叶片光合特征及其影响因素
2
2023
... 植物功能性状权衡反映了植物在资源获取与分配中采取的不同策略.由于荒漠环境中水分、养分、碳源和适宜生长时间窗口均十分有限,植物增强某一功能收益时往往需要承担另一功能受限的代价.例如,提高叶片光合获取能力可能增加蒸腾耗水风险,增强水力安全性可能降低导水效率和生长速率,增加地下投入和碳储存则可能压缩地上生长和繁殖分配[30-32].因此,荒漠植物功能性状权衡的实质,是植物在有限资源条件下围绕获碳、取水、保守、防御和恢复形成的综合资源配置和风险分散机制(图1).这些权衡既表现在同一器官内部,如叶片获取与保守、水力效率与安全,也表现在不同器官之间,如地上生长与地下投入、碳同化与碳储存,还体现在不同时间尺度上对降水脉冲、持续干旱和复水过程的响应差异.它们共同决定植物在降水脉冲、持续干旱和复水恢复过程中的响应速度、风险承受能力和长期适合度. ...
... 光合碳获取与蒸腾失水权衡的核心是气孔调节.气孔开放有利于CO₂进入叶片,提高净光合速率和碳同化能力,但同时会增加蒸腾耗水、加剧叶水势下降并提高木质部张力;气孔关闭能够减少水分损失、维持较高水力安全性,却会限制CO₂吸收和碳输入[30,50].水分利用效率WUE常被用于评价光合与蒸腾关系,但在干旱荒漠环境中需谨慎解释.较高水分利用效率可能表明植物在保持较高光合速率的同时有效控制蒸腾,也可能只是强干旱下气孔关闭导致蒸腾下降幅度大于光合下降,并不一定意味着适应性增强[8].不同光合途径、水源利用方式和水力策略会改变这一权衡.研究表明,C4和CAM植物通常能够以较低气孔导度维持较高碳收益,或通过昼夜气孔开放差异减少白天失水;C3荒漠植物则更多依靠深根取水、叶片退化、落叶避旱、气孔敏感关闭和较强水力安全性维持碳水平衡[51].因此,光合与蒸腾权衡并非单独由叶片气孔决定,而是根、茎、叶连续体共同调控的结果.这一认识提示,在评价荒漠植物水分利用效率时,不能简单将高WUE等同于高适应性,而应同步分析净光合速率、气孔导度、蒸腾速率、叶水势、叶片水力导度和实际生长表现.若根系能够持续供水、茎干导水能力较强且水力安全边际较大,较高气孔开放可转化为较高碳收益;若土壤快速干化或叶水势接近栓塞阈值,及时关闭气孔则成为避免水力失败的关键保护机制. ...
Non-structural carbohydrate dynamics of Pinus yunnanensis seedlings under drought stress and re-watering
0
2024
Impacts of groundwater depth and tree age on the non-structural carbohydrates of Haloxylon ammodendron
2
2024
... 植物功能性状权衡反映了植物在资源获取与分配中采取的不同策略.由于荒漠环境中水分、养分、碳源和适宜生长时间窗口均十分有限,植物增强某一功能收益时往往需要承担另一功能受限的代价.例如,提高叶片光合获取能力可能增加蒸腾耗水风险,增强水力安全性可能降低导水效率和生长速率,增加地下投入和碳储存则可能压缩地上生长和繁殖分配[30-32].因此,荒漠植物功能性状权衡的实质,是植物在有限资源条件下围绕获碳、取水、保守、防御和恢复形成的综合资源配置和风险分散机制(图1).这些权衡既表现在同一器官内部,如叶片获取与保守、水力效率与安全,也表现在不同器官之间,如地上生长与地下投入、碳同化与碳储存,还体现在不同时间尺度上对降水脉冲、持续干旱和复水过程的响应差异.它们共同决定植物在降水脉冲、持续干旱和复水恢复过程中的响应速度、风险承受能力和长期适合度. ...
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
荒漠植物叶片化学性状及其经济谱对水盐变化的响应
1
2018
... 叶片资源获取与资源保守权衡的核心是植物在碳收益、组织建成成本、叶片寿命和抗脱水能力之间进行资源配置的结果.在叶片经济谱框架下,较高的比叶面积、叶氮含量和光合速率通常代表快速资源获取策略,低比叶面积、较高叶质量面积和叶干物质含量、较厚叶片和较高组织密度通常代表资源保守策略[4,33].因此,叶片资源获取与资源保守权衡的本质,是快速碳回报与长期组织维持之间的取舍,前者有利于提高短期生产力,后者有利于提高长期存活概率. ...
荒漠植物性状权衡策略及功能多样性研究进展
2
2022
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
... [34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
油蒿叶片资源利用效率变化及其影响因素
1
2022
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
西鄂尔多斯地区3种荒漠植物的功能性状特征及生态策略
1
2026
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
河西走廊阻沙固沙带典型荒漠植物叶功能性状
1
2024
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
Leaf functional traits of dominant desert plants in the Hexi Corridor,Northwestern China:trade-off relationships and adversity strategies
1
2021
... 在荒漠环境中,这一权衡进一步表现为不同生活型和功能群之间的策略分化.短命植物、一年生草本和部分浅根型植物通常利用降水脉冲后的短暂资源窗口,形成较高的比叶面积、叶氮含量和光合能力,以较短叶寿命换取快速生长和繁殖[10,34-35];多年生灌木、半灌木和盐生植物则更多依赖低比叶面积、高叶干物质含量、厚叶和高组织密度等性状,降低水分损失和组织替换成本,维持长期生存和稳定生长[34,36].河西走廊优势荒漠植物研究表明,不同生活型在SLA、LDMC、叶厚度和水分利用效率等性状上存在明显差异,灌木和多年生物种更倾向于高组织投入和资源保守,而短命草本更依赖高光合潜力和快速生长[6,37-38].由此可见,资源获取型植物虽然能够快速利用短期水分和养分改善机会,但对连续干旱和水力胁迫更敏感;资源保守型植物虽然具有较强抗旱维持能力,但光合收益、叶片更新速度和种群扩张能力相对较低. ...
Variation and correlation among fine root traits of desert plants in arid areas of Northwest China
2
2024
... 荒漠降水多呈脉冲式发生,表层土壤在降水后短时间内水分可利用性较高,同时氮、磷、有机质和微生物活性也相对集中,但表层水分蒸发快、持续时间短;深层土壤水或地下水受短期气候波动影响较小,可在长期干旱阶段为植物提供相对稳定的水源,但深层土壤养分含量低,根系向深层延伸需要较高的碳建成和维持成本[17,39-41].因此,荒漠植物必须在浅层快速获取水分和养分与深层稳定获取水源之间进行空间配置和资源权衡. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
The fungal collaboration gradient dominates the root economics space in plants
0
2020
水分变化对荒漠植物红砂和珍珠猪毛菜细根性状的影响
2
2024
... 荒漠降水多呈脉冲式发生,表层土壤在降水后短时间内水分可利用性较高,同时氮、磷、有机质和微生物活性也相对集中,但表层水分蒸发快、持续时间短;深层土壤水或地下水受短期气候波动影响较小,可在长期干旱阶段为植物提供相对稳定的水源,但深层土壤养分含量低,根系向深层延伸需要较高的碳建成和维持成本[17,39-41].因此,荒漠植物必须在浅层快速获取水分和养分与深层稳定获取水源之间进行空间配置和资源权衡. ...
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
Water and nitrogen uptake patterns following moisture pulses in a cold desert community
1
2000
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
Complementary trade-offs between plant roots and mycorrhizal fungi traits across four alpine grasslands along a precipitation gradient in the northern Xizang Plateau
1
2025
... 浅根、高比根长、高根长密度和较强根系分枝有利于植物以较低生物量投入扩大吸收界面,快速捕获降水脉冲形成的表层水分和养分热点[5,16].这种策略适合短命植物、一年生草本以及依赖降水脉冲生长的物种,但其局限在于表层土壤快速干化后,植物容易失去主要水分来源.深根和较高根冠比则有利于植物利用深层土壤水或地下水,维持较稳定的叶水势、气孔开放和长期存活,适合多年生灌木和长期维持型植物[17,41];但其代价是需要投入更多碳资源用于根系建成和维持,从而可能减少地上生长、繁殖分配和表层细根更新,并降低植物对表层养分热点的快速响应能力.二型根系通过同时配置浅层根和深层根,扩大了水分利用深度和时间窗口,但也意味着更高的地下碳投入和根系维护成本[6].例如,中国西北荒漠和荒漠草原中,梭梭、白刺、沙拐枣、油蒿等优势种常通过深根、浅根或二型根系分化利用不同土层水分,降水脉冲后浅层根系快速响应,而持续干旱阶段深根和较高根冠比更有利于维持水分供应[17,39,42].此外,根系水分和养分获取权衡还表现为自主吸收与菌根协作之间的取舍.高比根长、较大比根面积和较快根系周转可提高自主吸收能力,但根寿命较短、维护成本较高;菌根协作可通过菌丝网络扩大土壤探索范围,提高磷等低移动性养分获取能力,但植物需要向真菌分配光合碳[43].由此可见,荒漠植物根系水分与养分获取权衡不仅体现为深层取水和浅层取养的空间分化,也体现为植物对降水脉冲、养分热点、菌根合作和根系寿命的动态响应. ...
荒漠植物叶片水分和功能性状特征及其相互关系
1
2013
... 水力效率与水力安全权衡的机制基础,在于木质部和叶片水力系统同时承担快速输水和避免栓塞两种功能.较大的导管直径、较高的导管连通性和叶片水力导度,有利于提高单位时间内的水分运输能力,从而维持气孔开放、蒸腾冷却和光合碳同化,使植物在水分条件改善时获得较高生长收益.然而,当土壤水分下降、大气蒸汽压亏缺升高时,木质部张力增强,大导管和高连通性结构更容易发生气穴形成和栓塞扩展,进而增加水力失败风险.相反,较小导管、较高导管密度、较厚导管壁、较高木材密度和较强抗栓塞能力,能够降低栓塞风险,使P50和P88更负、水力安全边际增大,但通常以降低导水效率、蒸腾通量和快速生长潜力为代价[7,44-46]. ...
A trade-off between leaf hydraulic efficiency and safety across three xerophytic species in response to increased rock fragment content
0
2024
Hydraulic mechanism of limiting growth and maintaining survival of desert shrubs in arid habitats
2
2024
... 水力效率与水力安全权衡的机制基础,在于木质部和叶片水力系统同时承担快速输水和避免栓塞两种功能.较大的导管直径、较高的导管连通性和叶片水力导度,有利于提高单位时间内的水分运输能力,从而维持气孔开放、蒸腾冷却和光合碳同化,使植物在水分条件改善时获得较高生长收益.然而,当土壤水分下降、大气蒸汽压亏缺升高时,木质部张力增强,大导管和高连通性结构更容易发生气穴形成和栓塞扩展,进而增加水力失败风险.相反,较小导管、较高导管密度、较厚导管壁、较高木材密度和较强抗栓塞能力,能够降低栓塞风险,使P50和P88更负、水力安全边际增大,但通常以降低导水效率、蒸腾通量和快速生长潜力为代价[7,44-46]. ...
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
Hydraulic safety and growth rather than climate of origin influence survival in desert shrubs and trees
0
2023
Leaf hydraulic and stomatal traits coordinated with rooting depth in desert species
3
2026
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
... [48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
... 功能性状权衡能够为预测荒漠植被对气候变化的响应提供机制依据.气候变化通过干旱增强、降水格局重组、极端高温增加、大气蒸发需求升高和地下水位下降等过程,重新改变植物在碳获取、水分消耗、资源保守、防御投入和复水恢复之间的选择压力[1-2].当极端干旱、热浪和高蒸发需求增强时,群落可能向资源保守型、水力安全型和深根型策略偏移[20,48];在降水脉冲增强、生长季短期水分改善或复水机会增加的情景下,快速资源获取型、浅根型和复水恢复能力较强的物种则可能获得阶段性优势.增温和降水格局变化还会影响物候节律、资源利用层位和群落边界.例如,小雨事件减少而强降水事件增加时,深根或二型根系植物可能更倾向于利用深层入渗水分;春季或生长季前期降水提前时,短命植物和浅根草本可能在萌发、生长和繁殖上占据优势[9-10].因此,气候变化背景下荒漠植被响应的本质,是不同功能性状组合在新的水热条件和资源脉冲格局下重新排序.将功能性状权衡纳入预测,可把物种分布变化与生理机制、资源利用策略和生态系统功能变化联系起来,从而提高对荒漠植被退化、灌木化、群落边界移动和生产力波动的解释能力.叶片经济性状可指示资源利用速度和碳获取策略,根系性状可指示水源利用层次和地下资源保障能力,水力性状可指示干旱死亡风险,碳储存性状可指示复水恢复和生态韧性,功能多样性则可反映群落对气候波动的缓冲能力. ...
Water Uptake by Artemisia ordosica roots at different topographic positions in an alpine desert dune on the northeastern Qinghai-Tibet Plateau
1
2022
... 干旱荒漠环境中,水力效率与水力安全权衡还具有明显的尺度效应.在器官尺度上表现为导管结构与抗栓塞能力的取舍,在整株尺度上则表现为根系供水、茎干输水、叶片蒸腾和气孔调节之间的协调[5-6].研究显示,荒漠灌木叶片功能性状可调节水力权衡与协同关系,水力安全和生长状态对荒漠灌木存活具有重要影响[46-48].荒漠植物能否在高蒸汽压亏缺条件下维持适度气孔开放,取决于根系水源、木质部安全边际和碳储备状态的共同作用,这一过程受到气孔关闭阈值、根系取水能力和碳储存状态共同调节[49].高导水效率只有在根系能够持续供水且叶水势尚未接近栓塞阈值时,才能转化为较高光合收益;而气孔较早关闭可减少蒸腾耗水,维持较大的水力安全边际,但也会限制CO₂吸收和NSC补充[22-23].例如柠条等荒漠灌木在干旱生境中可通过限制生长、提高水力安全维持生存[48].因此,水力效率与安全权衡可以理解为导管结构、水分运输、叶水势变化、气孔响应、栓塞阈值、碳收益与死亡风险之间的连续机制链.高效率策略适于短期水分改善阶段快速获碳,高安全策略则适于长期干旱背景下维持存活. ...
Engineering crassulacean acid metabolism to improve water-use efficiency
1
2014
... 光合碳获取与蒸腾失水权衡的核心是气孔调节.气孔开放有利于CO₂进入叶片,提高净光合速率和碳同化能力,但同时会增加蒸腾耗水、加剧叶水势下降并提高木质部张力;气孔关闭能够减少水分损失、维持较高水力安全性,却会限制CO₂吸收和碳输入[30,50].水分利用效率WUE常被用于评价光合与蒸腾关系,但在干旱荒漠环境中需谨慎解释.较高水分利用效率可能表明植物在保持较高光合速率的同时有效控制蒸腾,也可能只是强干旱下气孔关闭导致蒸腾下降幅度大于光合下降,并不一定意味着适应性增强[8].不同光合途径、水源利用方式和水力策略会改变这一权衡.研究表明,C4和CAM植物通常能够以较低气孔导度维持较高碳收益,或通过昼夜气孔开放差异减少白天失水;C3荒漠植物则更多依靠深根取水、叶片退化、落叶避旱、气孔敏感关闭和较强水力安全性维持碳水平衡[51].因此,光合与蒸腾权衡并非单独由叶片气孔决定,而是根、茎、叶连续体共同调控的结果.这一认识提示,在评价荒漠植物水分利用效率时,不能简单将高WUE等同于高适应性,而应同步分析净光合速率、气孔导度、蒸腾速率、叶水势、叶片水力导度和实际生长表现.若根系能够持续供水、茎干导水能力较强且水力安全边际较大,较高气孔开放可转化为较高碳收益;若土壤快速干化或叶水势接近栓塞阈值,及时关闭气孔则成为避免水力失败的关键保护机制. ...
Leaf physiological and morphological constraints of water-use efficiency in C3 plants
1
2023
... 光合碳获取与蒸腾失水权衡的核心是气孔调节.气孔开放有利于CO₂进入叶片,提高净光合速率和碳同化能力,但同时会增加蒸腾耗水、加剧叶水势下降并提高木质部张力;气孔关闭能够减少水分损失、维持较高水力安全性,却会限制CO₂吸收和碳输入[30,50].水分利用效率WUE常被用于评价光合与蒸腾关系,但在干旱荒漠环境中需谨慎解释.较高水分利用效率可能表明植物在保持较高光合速率的同时有效控制蒸腾,也可能只是强干旱下气孔关闭导致蒸腾下降幅度大于光合下降,并不一定意味着适应性增强[8].不同光合途径、水源利用方式和水力策略会改变这一权衡.研究表明,C4和CAM植物通常能够以较低气孔导度维持较高碳收益,或通过昼夜气孔开放差异减少白天失水;C3荒漠植物则更多依靠深根取水、叶片退化、落叶避旱、气孔敏感关闭和较强水力安全性维持碳水平衡[51].因此,光合与蒸腾权衡并非单独由叶片气孔决定,而是根、茎、叶连续体共同调控的结果.这一认识提示,在评价荒漠植物水分利用效率时,不能简单将高WUE等同于高适应性,而应同步分析净光合速率、气孔导度、蒸腾速率、叶水势、叶片水力导度和实际生长表现.若根系能够持续供水、茎干导水能力较强且水力安全边际较大,较高气孔开放可转化为较高碳收益;若土壤快速干化或叶水势接近栓塞阈值,及时关闭气孔则成为避免水力失败的关键保护机制. ...
Consistency between an allometric approach and optimal partitioning theory in global patterns of plant biomass allocation
1
2007
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
Biomass allocation to leaves,stems and roots:meta-analyses of interspecific variation and environmental control
1
2012
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
Life history strategies drive size-dependent biomass allocation patterns of dryland ephemerals and shrubs
1
2019
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
内蒙古荒漠草原优势植物叶形态性状与地上生物量对多资源协同的响应
1
2025
... 地上生长与地下投入权衡的机制基础,是有限光合产物在叶片、枝条、繁殖器官和根系之间的分配竞争.地上部分主要承担光合碳获取、空间竞争、种群更新和繁殖扩散功能,地下部分则承担水分养分获取、固着支撑和部分碳储存功能.在干旱荒漠环境中,增加地下投入有利于扩大根系吸水范围,提高资源获取稳定性,并增强长期抗旱维持能力;但更多碳资源分配到根系会减少叶面积扩展、枝条生长和繁殖输出,从而降低短期地上生产力和种群扩张速度[7,9].不同生活型荒漠植物在这一权衡中表现出明显分化[52-53].多年生灌木通常具有较高根冠比、较深根系和较强地下维持能力,能够在长期干旱和资源波动条件下保持稳定水分供应和较高存活率;短命草本和一年生植物则倾向于在短暂湿润期快速形成地上生物量,并迅速完成开花、结实和种子更新,以生活史压缩方式避开严重干旱[54-55].因此,地上—地下分配不是固定不变的,而是随降水格局、植物发育阶段和植被恢复阶段动态调整,本质上反映短期繁殖收益与长期水分保障之间的取舍.这一机制对于解释荒漠植物生活型差异具有重要意义.短命草本通过快速地上投资实现种群更新,多年生灌木通过持续地下投入维持个体存活,二者共同构成干旱区群落中快速响应与长期维持并存的功能格局. ...
Understanding the roles of nonstructural carbohydrates in forest trees-from what we can measure to what we want to know
1
2016
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
Mechanisms of plant survival and mortality during drought:why do some plants survive while others succumb to drought?
1
2008
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
Fixed allocation patterns,rather than plasticity,benefit recruitment and recovery from drought in seedlings of a desert shrub
0
2016
Traits link drought resistance with herbivore defence and plant economics in semi-arid grasslands:the central roles of phenology and leaf dry matter content
1
2020
... 生长、防御与储存权衡的机制基础,在于植物可利用碳源有限而碳汇需求多样.荒漠植物生长需要将碳、水分和养分投入叶片扩展、枝条伸长、根系生长和繁殖器官形成;防御过程需要投入结构性组织、渗透调节物质、抗氧化系统和次生代谢物,以提高植物对干旱、强辐射、风沙损伤和食草压力的抵抗能力[29,56];储存过程则将部分碳以可溶性糖和淀粉等NSC形式保留,用于维持干旱期间基础代谢、组织修复和复水后的功能恢复.轻度或短期干旱时,细胞扩张和器官生长通常先于光合作用受到抑制,碳利用下降,NSC可能积累;长期或重度干旱时,气孔关闭和光合受限导致碳输入减少,而呼吸维持、渗透调节、防御代谢和组织修复仍需持续消耗碳,NSC储备可能下降并影响复水恢复能力[57-59].已有研究表明,荒漠优势灌木NSC动态受前期茎水势和气温共同影响[28],梭梭NSC分配还会随地下水埋深和树龄发生变化[32],优势荒漠灌木叶片碳水化合物分配对降水变异具有明显响应[29].因此,生长、防御与储存不是简单的此消彼长,而是会随干旱强度、复水机会、生活史阶段和功能类型发生动态调整.对于荒漠植物而言,储存碳具有主动适应意义,它既可在干旱期间维持呼吸和渗透调节,又可在复水后支持根系再生、叶片恢复和水力功能修复.其生态代价是减少当前可用于快速生长和繁殖的碳资源. ...
Functional traits and drought strategy predict leaf thermal tolerance
1
2023
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
水力性状对荒漠植物群落物种多度分布格局的影响
1
2023
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
Low rainfall-induced shift in leaf trait relationship within species along a semi-arid sandy land transect in Northern China
0
2011
降水变化下荒漠草原植物群落共存物种根、叶功能性状的差异与权衡
1
2026
... 功能性状权衡可以解释荒漠植物群落中不同物种为何能够在资源极度受限的环境中共存.荒漠群落并非由单一最耐旱类型的植物组成,而是由具有不同水分来源、资源利用时间、生活史节律和抗逆策略的物种共同构成.不同物种在叶片经济性状、根系分布、水力安全性、耐盐能力和碳分配方式上的差异,使其能够在空间、时间和功能维度上形成生态位分化,降低资源利用重叠和直接竞争强度[7,60].这说明荒漠群落稳定性并不来自某一优势策略的绝对占优,而来自多种性状组合在不同资源层位和时间窗口中的互补.空间生态位分化主要体现在根系深度、水分来源和水盐生境利用差异,如深根灌木利用深层土壤水或地下水,浅根草本和短命植物利用降水后表层水分和养分,耐盐植物占据盐分较高的微生境[61-63].时间生态位分化则体现为降水脉冲利用和生活史节律差异.短命植物和一年生草本能够在短暂湿润期迅速完成萌发、生长和繁殖,多年生灌木则依赖资源保守、水力安全、深根取水和碳储存维持长期稳定生存[6-7,10].因此,多维性状差异比单一性状更能解释荒漠植物共存.强干旱、高盐和贫瘠环境会筛选出小叶、厚叶、深根、高水分利用效率和高水力安全性等趋同性状;但微地形差异、土壤水盐异质性、降水脉冲和种间竞争又会促进根系深度、物候节律、光合途径、生长速率和耐盐能力等性状分化. ...
Aspirational goals for the future of functional traits in restoration:a response to Gornish
1
2025
... 功能性状权衡研究可将荒漠化治理和植被恢复从经验性物种选择推进到机制化群落配置.传统固沙植物筛选多关注成活率、生长速度、覆盖度和早期固沙效果,但这些指标难以判断人工植被在长期干旱、地下水下降和极端气候事件下的稳定性.基于功能性状权衡的恢复思路强调,植物材料选择不只评价其能否快速成活,而应综合考虑根系固沙能力、水分来源、水分利用效率、水力安全性、碳储存能力、复水恢复能力以及根际土壤改良潜力[64-67].不同立地条件下,固沙植物筛选应突出不同性状组合.极端干旱或地下水下降明显区域,优先选择深根或二型根系明显、水力安全性强、资源利用保守、组织寿命长和碳储存能力较高的植物;半固定沙地、降水脉冲明显或恢复初期区域,可配置快速覆盖型草本、先锋灌木和长期稳定型灌木,形成快速覆盖、深根固沙和长期维持的功能互补结构;盐分较高或土壤贫瘠区域,则增加耐盐、固氮或根际改土能力较强的植物.恢复群落配置的关键不在于筛选单个最优物种,而在于构建适应不同资源维度和恢复阶段的性状组合,以提高功能冗余、资源利用效率和抗扰动能力.因此,性状导向的恢复目标应由单纯追求成活率和覆盖度,转向关注水分平衡、功能互补、土壤改良和长期稳定性[68-69].通过长期监测根系深度、水分利用效率、水力安全边际、NSC储存和复水恢复能力,可更准确评估人工植被是否具有持续维持能力,并为不同区域、不同恢复目标下的物种配置和后期管理提供依据. ...
Functional traits and ecosystem services in ecological restoration
0
2020
Four reasons why functional traits are not being used in restoration practice
0
2023
Boosting multifunctionality through adaptive trait-based species addition in ongoing restoration projects
1
2026
... 功能性状权衡研究可将荒漠化治理和植被恢复从经验性物种选择推进到机制化群落配置.传统固沙植物筛选多关注成活率、生长速度、覆盖度和早期固沙效果,但这些指标难以判断人工植被在长期干旱、地下水下降和极端气候事件下的稳定性.基于功能性状权衡的恢复思路强调,植物材料选择不只评价其能否快速成活,而应综合考虑根系固沙能力、水分来源、水分利用效率、水力安全性、碳储存能力、复水恢复能力以及根际土壤改良潜力[64-67].不同立地条件下,固沙植物筛选应突出不同性状组合.极端干旱或地下水下降明显区域,优先选择深根或二型根系明显、水力安全性强、资源利用保守、组织寿命长和碳储存能力较高的植物;半固定沙地、降水脉冲明显或恢复初期区域,可配置快速覆盖型草本、先锋灌木和长期稳定型灌木,形成快速覆盖、深根固沙和长期维持的功能互补结构;盐分较高或土壤贫瘠区域,则增加耐盐、固氮或根际改土能力较强的植物.恢复群落配置的关键不在于筛选单个最优物种,而在于构建适应不同资源维度和恢复阶段的性状组合,以提高功能冗余、资源利用效率和抗扰动能力.因此,性状导向的恢复目标应由单纯追求成活率和覆盖度,转向关注水分平衡、功能互补、土壤改良和长期稳定性[68-69].通过长期监测根系深度、水分利用效率、水力安全边际、NSC储存和复水恢复能力,可更准确评估人工植被是否具有持续维持能力,并为不同区域、不同恢复目标下的物种配置和后期管理提供依据. ...
Functional traits are used in restoration practice:a response to Merchant
1
2023
... 功能性状权衡研究可将荒漠化治理和植被恢复从经验性物种选择推进到机制化群落配置.传统固沙植物筛选多关注成活率、生长速度、覆盖度和早期固沙效果,但这些指标难以判断人工植被在长期干旱、地下水下降和极端气候事件下的稳定性.基于功能性状权衡的恢复思路强调,植物材料选择不只评价其能否快速成活,而应综合考虑根系固沙能力、水分来源、水分利用效率、水力安全性、碳储存能力、复水恢复能力以及根际土壤改良潜力[64-67].不同立地条件下,固沙植物筛选应突出不同性状组合.极端干旱或地下水下降明显区域,优先选择深根或二型根系明显、水力安全性强、资源利用保守、组织寿命长和碳储存能力较高的植物;半固定沙地、降水脉冲明显或恢复初期区域,可配置快速覆盖型草本、先锋灌木和长期稳定型灌木,形成快速覆盖、深根固沙和长期维持的功能互补结构;盐分较高或土壤贫瘠区域,则增加耐盐、固氮或根际改土能力较强的植物.恢复群落配置的关键不在于筛选单个最优物种,而在于构建适应不同资源维度和恢复阶段的性状组合,以提高功能冗余、资源利用效率和抗扰动能力.因此,性状导向的恢复目标应由单纯追求成活率和覆盖度,转向关注水分平衡、功能互补、土壤改良和长期稳定性[68-69].通过长期监测根系深度、水分利用效率、水力安全边际、NSC储存和复水恢复能力,可更准确评估人工植被是否具有持续维持能力,并为不同区域、不同恢复目标下的物种配置和后期管理提供依据. ...
Harnessing plant-soil-microbiome synergy for resilient desert restoration
1
2025
... 功能性状权衡研究可将荒漠化治理和植被恢复从经验性物种选择推进到机制化群落配置.传统固沙植物筛选多关注成活率、生长速度、覆盖度和早期固沙效果,但这些指标难以判断人工植被在长期干旱、地下水下降和极端气候事件下的稳定性.基于功能性状权衡的恢复思路强调,植物材料选择不只评价其能否快速成活,而应综合考虑根系固沙能力、水分来源、水分利用效率、水力安全性、碳储存能力、复水恢复能力以及根际土壤改良潜力[64-67].不同立地条件下,固沙植物筛选应突出不同性状组合.极端干旱或地下水下降明显区域,优先选择深根或二型根系明显、水力安全性强、资源利用保守、组织寿命长和碳储存能力较高的植物;半固定沙地、降水脉冲明显或恢复初期区域,可配置快速覆盖型草本、先锋灌木和长期稳定型灌木,形成快速覆盖、深根固沙和长期维持的功能互补结构;盐分较高或土壤贫瘠区域,则增加耐盐、固氮或根际改土能力较强的植物.恢复群落配置的关键不在于筛选单个最优物种,而在于构建适应不同资源维度和恢复阶段的性状组合,以提高功能冗余、资源利用效率和抗扰动能力.因此,性状导向的恢复目标应由单纯追求成活率和覆盖度,转向关注水分平衡、功能互补、土壤改良和长期稳定性[68-69].通过长期监测根系深度、水分利用效率、水力安全边际、NSC储存和复水恢复能力,可更准确评估人工植被是否具有持续维持能力,并为不同区域、不同恢复目标下的物种配置和后期管理提供依据. ...


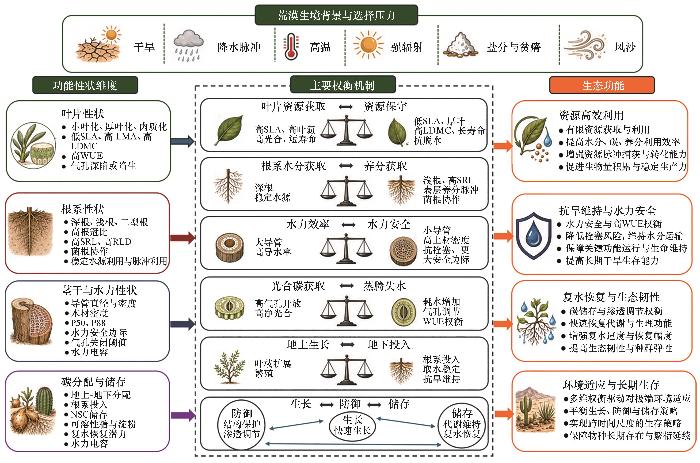

 甘公网安备 62010202000688号

