辽西沙地樟子松( Pinus sylvestris var. mongolica
杨禹轩 , 1 , 王雪峰 2 , 杨婷婷 1 , 张日升 3 , 王凯 1 , 邰姗姗 , 1
1.辽宁工程技术大学 环境科学与工程学院,辽宁 阜新 123000
2.吉林农业大学 资源与环境学院,吉林 长春 130118
3.辽宁省沙地治理与利用研究所 辽宁章古台科尔沁沙地生态系统国家定位观测研究站,辽宁 阜新 123000
Characteristics of soil nematode community in Pinus sylvestris var.mongolica sand-fixing forest in western Liaoning
Yang Yuxuan , 1 , Wang Xuefeng 2 , Yang Tingting 1 , Zhang Risheng 3 , Wang Kai 1 , Tai Shanshan , 1
1.College of Environmental Science and Engineering,Liaoning Technical University,Fuxin 123000,Liaoning,China
2.College of Resources and Environment,Jilin Agricultural University,Changchun 130118,China
3.Liaoning Zhanggutai Desert Ecosystem Research Station,Liaoning Institute of Sandy Land Control and Utilization,Fuxin 123000,Liaoning,China
通讯作者: 邰姗姗(E-mail: sstai33@126.com )
收稿日期: 2026-03-20
修回日期: 2026-05-06
基金资助:
国家重点研发计划项目 . 2024YFD1501700 辽宁省基本科研项目 . LJ212610147065
Received: 2026-03-20
Revised: 2026-05-06
作者简介 About authors
杨禹轩(2000—),男,辽宁阜新人,硕士研究生,主要研究方向为水土保持与荒漠化防治E-mail:1427308167@qq.com
, E-mail:1427308167@qq.com
摘要
为了解治理沙地过程中樟子松(Pinus sylvestris var. mongolica )固沙林营造对土壤线虫群落的影响,以科尔沁沙地南缘的辽宁省阜新市彰武县10、29、46、60年林龄的樟子松固沙林为对象,研究了土壤线虫群落结构和多样性的动态变化及其影响因素。结果表明:辽西沙地樟子松固沙林林龄对土壤线虫数量有显著影响,其变化总体表现为随林龄增加先升高后下降的趋势。食细菌线虫在各林龄样地中均占据主导地位,林龄46年样地的占比最大,达67.2%;食真菌线虫比例整体较低,植食性线虫和杂食-捕食性线虫比例均在60年样地达到最高值,分别为33.5%和10.6%。土壤线虫群落生态指数也随着林龄的增加表现出差异,其中线虫丰富度指数、多样性指数、优势度指数和成熟度指数均随着林龄的增加而上升,表明随着林龄增加,线虫群落物种丰富度显著提升,土壤线虫群落结构较为复杂,土壤生态系统趋于稳定。冗余分析表明土壤pH值、有机碳、全氮和速效磷是影响线虫群落特征的主要环境因子。综上,樟子松固沙林通过林龄演替调控土壤资源供给与食物网结构,促进土壤线虫群落由数量提升向结构稳定转变,但在成熟及后期阶段植食性线虫比例上升,可能引发潜在的土壤生态退化风险,应进一步强化林分中后期的经营管理与生态调控措施。
关键词:
土壤线虫群落 樟子松(Pinus sylvestris var. mongolica ) 林龄 沙地 多样性
Abstract
In order to understand the effect of Pinus sylvestris var. mongolica sand-fixing forest on soil nematode community in the process of sand control, the 10,29,46 and 60-year-old Pinus sylvestris var. mongolica sand-fixing forest in Zhangwu County, Fuxin City, Liaoning Province, on the southern edge of Horqin Sandy Land was studied. The dynamic changes of soil nematode community structure and diversity and their influencing factors during the growth of Pinus sylvestris var. mongolica sand-fixing forest were studied. The results showed that the age of Pinus sylvestris var. mongolica sand-fixing forest in western Liaoning had a significant effect on the number of soil nematodes, and the overall change showed a trend of increasing first and then decreasing with the increase of forest age. The bacterial-feeding nematodes were dominant in all forest age plots, and the proportion of 46-year-old plots was the largest, reaching 67.2%. The proportion of fungal-feeding nematodes was generally low, and the proportions of phytophagous nematodes and omnivorous-predator nematodes reached the highest values in the 60-year plot, which were 33.5% and 10.6%, respectively. The ecological index of soil nematode community also showed differences with the increase of forest age, among which the richness index, diversity index, dominance index and maturity index of nematode increased with the increase of forest age, indicating that with the increase of forest age, the species richness of nematode community increased significantly, the structure of soil nematode community was more complex, and the soil ecosystem tended to be stable. Redundancy analysis showed that soil pH, organic carbon, total nitrogen and available phosphorus were the main environmental factors affecting nematode community characteristics. In summary, Pinus sylvestris var. mongolica sand-fixing forest regulates soil resource supply and food network structure through forest age succession, and promotes the transformation of soil nematode community from quantity increase to structural stability. However, the proportion of phytophagous nematodes increases in the mature and late stages, which may lead to potential soil ecological degradation risks. Therefore, the management and ecological control measures in the middle and late stages of the stand should be further strengthened.
Keywords:
soil nematode community Pinus sylvestris var. mongolica stand age sandy soil diversity
本文引用格式
杨禹轩, 王雪峰, 杨婷婷, 张日升, 王凯, 邰姗姗. 辽西沙地樟子松( Pinus sylvestris var. mongolica . 中国沙漠 [J], 2026, 46(5): 381-390 doi:10.7522/j.issn.1000-694X.2026.00067
Yang Yuxuan, Wang Xuefeng, Yang Tingting, Zhang Risheng, Wang Kai, Tai Shanshan. Characteristics of soil nematode community in Pinus sylvestris var.mongolica sand-fixing forest in western Liaoning . Journal of Desert Research
0 引言
土地荒漠化已成为全球性突出的生态环境问题,既严重威胁生物多样性的维持与生态系统功能的稳定,还对人类社会的生产活动和生活安全造成显著影响[1 ] 。辽宁省西部地区自然植被覆盖度低,土地沙化现象严重,是辽宁省沙化土地的主要分布区域。沙化过程往往伴随着植被退化、土壤结构破坏及养分流失,进而导致土壤生物栖息环境恶化、生物类群减少以及地下食物网结构简化,对区域生物多样性及生态系统功能产生持续负面影响[2 ] 。在此背景下,人工造林被广泛认为是防治土地荒漠化、恢复生态系统结构与功能的关键措施[3 ] 。自1978年实施的“三北”防护林体系建设工程,在防治水土流失、抑制风蚀与沙化进程等方面发挥了重要作用[4 ] ,也有效遏制并改善了辽西地区的土地沙化问题,促进了区域生态环境的整体恢复与可持续发展。因此,系统开展辽西沙地人工固沙林土壤生物多样性特征及生态系统恢复状况研究,并综合评估其生态环境效应,对于揭示该地区人工植被恢复过程中的生态响应特征及指导可持续管理具有重要意义。
樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] 。樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] 。然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少。土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] 。相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] 。在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] 。土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] 。
本研究在科尔沁沙地南缘的辽宁省阜新市彰武县章古台镇,选择不同林龄的樟子松固沙林作为研究对象,分析土壤线虫群落特征与土壤理化性质之间的相互关系,明确对土壤线虫群落产生主要影响的土壤因子,为科学评估樟子松固沙林生长过程中的土壤生态系统恢复状况、指导辽西沙地人工林的可持续经营提供理论依据。
1 研究区和方法
1.1 研究区概况
研究区位于辽宁省阜新市彰武县章古台镇(42°28′N, 121°55′E),地处科尔沁沙地南缘,平均海拔226 m。该区域属温带大陆性季风气候,年均气温7.2 ℃,年降水量450~550 mm,集中在7—9月,年蒸发量1 200~1 580 mm。主导风向为西南,年均风速3.8 m∙s-1 ,最大风速32 m∙s-1 ,风沙活动集中在3—5月。土壤主要为风沙土,植被类型主要为人工种植的沙生植物,包括樟子松(Pinus sylvestris var. mongolica )、杨树(Populus przewalskii )、油松(Pinus tabulaeformis. )、沙地赤松(Pinus densiflora )、榆树(Ulmus pumila )等。
1.2 样地设计与样品采集
2024年7月,采用空间代替时间方法,选取林龄为10(S10)、29(S29)、46(S46)、60(S60)年的樟子松人工林样地进行样品采集。各样地的地形均较平缓,海拔无明显差异,样地间距离超过2 km,土壤类型基本一致。每个样地设置3个20 m×20 m样方,共12个样方,样方间距及样方距离道路均>100 m。每个样方按照“S”型随机取样法布设10个采样点,各样点位于樟子松冠层下。去掉表层凋落物后使用直径5 cm的土钻采集0~20 cm表层土壤,10个点位土样过筛去掉根系、石块等杂质混合为一个混合样。土壤样品用4 ℃保温箱运回实验室,分2组,一组自然风干测定土壤理化性质,一组用4 ℃冰箱保存,用于土壤线虫提取和鉴定。
1.3 土壤理化性质测定
采用烘干法测定土壤含水量(SM),电位法测定土壤pH,重铬酸钾外加热法测定土壤有机碳(SOC),凯氏定氮法测定全氮(TN),碳酸氢钠浸提-钼锑抗比色法测定速效磷(Olsen-P),2 mol·L-1 KCl 溶液浸提法测定硝态氮(NO3 - - N)和铵态氮(NH4 + - N)[16 ] ,各样地土壤理化性质结果见表1 。
1.4 土壤线虫分离鉴定
采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] 。线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度。每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定。根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] 。
1.5 土壤线虫指数计算
线虫多样性指数: Margalef丰富度指数(SR )、Shannon多样性指数(H' )、Simpson优势度指数(D )、Pielou均匀度指数(J )。
线虫生态功能指数:成熟度指数(MI )、植物寄生线虫指数(PPI )、线虫通路比值(NCR )、瓦斯乐斯卡指数(WI )、富集指数(EI )和结构指数(SI )[23 -24 ] 。
1.6 数据处理与分析
采用Excel 2021计算土壤线虫多样性指数和生态功能指数,采用单因素方差分析(ANOVA)和(LSD)多重比较检验不同林龄樟子松固沙林土壤线虫群落特征的显著差异(P< 0.05),通过Pearson相关性分析检验土壤理化性质与土壤线虫群落特征的相关性,通过冗余分析(RDA)分析土壤线虫群落变化的驱动因素。统计分析使用SPSS25.0,RDA分析使用CANOCO5.0,作图使用Origin 2024。
2 结果与分析
2.1 不同林龄樟子松固沙林土壤线虫群落组成
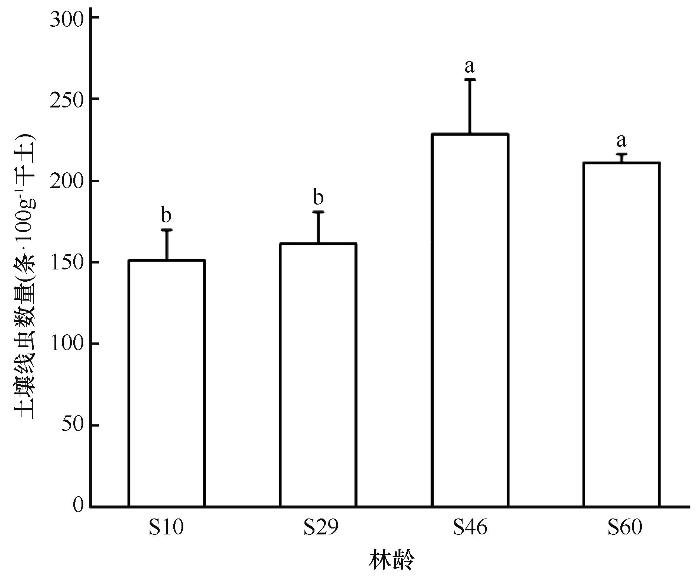
对所有样地土壤样品进行调查,获取的线虫隶属于2纲8目19科29属,包括食细菌线虫14属、食真菌线虫5属、植食性线虫6属以及杂食-捕食性线虫4属(表2 )。不同林龄樟子松林样地间土壤线虫数量存在显著差异(图1 )。随着樟子松林龄的增加,土壤线虫数量呈先增加后降低变化趋势。在S10样地中土壤线虫总数量最低为(151±19)条/100g干土,但与S29样地线虫总数(161±20条/100g干土)差异不显著。在S46样地土壤线虫数量达最高值(229±33条/100g干土),S60样地线虫数量下降至(211±5)条/100g干土,仍显著高于S10样地和S29样地(P< 0.05)。
图1
图1
不同林龄樟子松固沙林的土壤线虫数量
注: 图中不同字母表示在不同林龄下樟子松固沙林土壤线虫数量差异显著(P< 0.05),误差线表示标准误差
Fig.1
The number of soil nematodes in different forest ages of Pinus sylvestris var.mongolica sand-fixing forest
不同林龄樟子松固沙林样地中,土壤线虫检出属数量存在显著差异,且线虫群落组成也有着明显的不同。食细菌线虫丽突属、头叶属和鹿角唇属的相对丰度均超过10%,为优势属。丽突属相对丰度为10.9%~22.2%,在S29样地中丰度最高(22.2%),在29年、46年、60年样地中随着林龄增加有逐渐下降的趋势;头叶属在各样地间变化较小,相对丰度为9.3%~11.6%。鹿角唇属的相对丰度在不同样地间差异非常显著(5.8%~14.1%),其中S10样地和S46样地显著高于其他样地。植食性线虫螺旋属的相对丰度最高,为11.3%~18.3%,并在S60样地中显著升高。
2.2 不同林龄樟子松固沙林土壤线虫营养类群
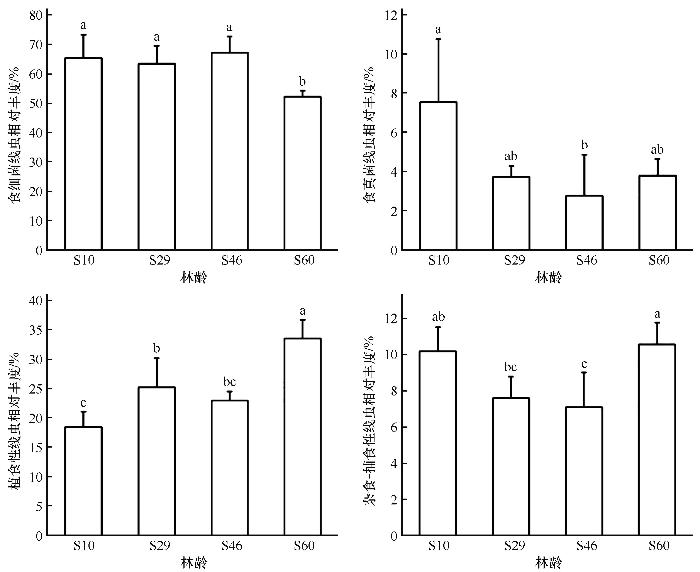
不同林龄樟子松固沙林的土壤线虫群落营养类群结构存在较大差异(图2 )。食细菌线虫在各林龄样地中均占据主导地位,比例在S46样地达到最高(67.2%),在S60样地中降至最低(52.1%)。食真菌线虫比例整体较低,并随林龄变化呈先降后升趋势,由S10样地的7.5%下降至S46样地的2.8%,随后在S60样地略升至3.8%。植食性线虫比例随林龄增加而上升,在S60样地达到最高值(33.5%),显著高于S10(18.4%)和S29(25.2%)样地。杂食-捕食性线虫比例在不同林龄样地间波动较小,为7.1%~10.6%,S60样地略高于其他样地(图3 )。
图2
图2
不同林龄樟子松固沙林土壤线虫区系分析
Fig.2
Analysis of soil nematode flora in different forest ages of Pinus sylvestris var.mongolica sand-fixing forest
图3
图3
不同林龄樟子松固沙林土壤线虫群落营养类群比例
注: 图中不同字母表示在不同林龄下樟子松固沙林土壤线虫数量差异显著(P< 0.05),误差线表示标准误差
Fig.3
Proportion of trophic groups of soil nematode community in different forest ages of Pinus sylvestris var.mongolica sand-fixing forest
2.3 不同林龄樟子松固沙林土壤线虫群落生态指数及区系分析
不同林龄樟子松人工林的土壤线虫群落生态指数存在明显差异(表3 )。随着林龄增加,线虫群落的Margalef丰富度指数(SR )、Shannon多样性指数(H' )和Simpson优势度指数(D )总体呈上升趋势,S46、S60样地均高于S10、S29样地。Pielou均匀度指数(J )在S46样地最低,表明该林龄阶段线虫群落分布趋于不均。线虫成熟度指数(MI )总体上随林龄增加而升高,土壤生态系统稳定性不断增强;瓦斯乐斯卡指数(WI )总体上呈下降趋势,在S60样地中最低,表明土壤食物网结构随林龄增长发生调整。中高林龄样地中植物寄生线虫指数(PPI )较高,反映植食性线虫比例增加。线虫通路比值(NCR )在各样地中一般大于0.9,表明不同林龄阶段的土壤有机质分解过程均以细菌分解通道为主。
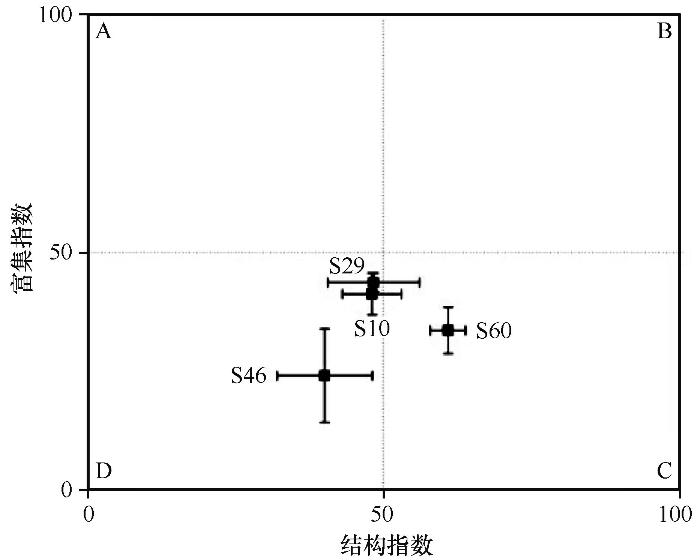
从土壤线虫区系分析结果可见(图2 ),S10、S29、S46样地分布在D象限,S60样地分布于C象限,表明S60样地土壤食物网趋于稳定和完善,土壤中可利用养分并不处于富集状态,资源输入相对平稳,外界干扰较弱。但是,土壤线虫总量较S46样地有所下降,呈现出稳定性增强与数量降低的消长特征,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征。
2.4 土壤线虫群落与土壤理化性质相关性
土壤理化性质对线虫数量、营养类群组成及生态指数均具有显著影响(表4 )。线虫数量与土壤有机碳显著正相关(P< 0.05)。食细菌线虫比例与有机碳、速效磷含量均显著正相关(P< 0.05);食真菌线虫比例与土壤pH值显著负相关(P< 0.05);植食性线虫比例与全氮含量显著正相关(P< 0.05)。线虫生态指数中,Margalef丰富度指数与全氮含量极显著正相关(P< 0.01),线虫通路比值与全氮含量显著正相关(P< 0.05),Pielou均匀度指数与有机碳、速效磷含量均显著负相关(P< 0.05),Shannon多样性指数与土壤pH值极显著负相关(P< 0.01),植物寄生线虫指数与有机碳、全氮含量显著正相关(P< 0.05)。
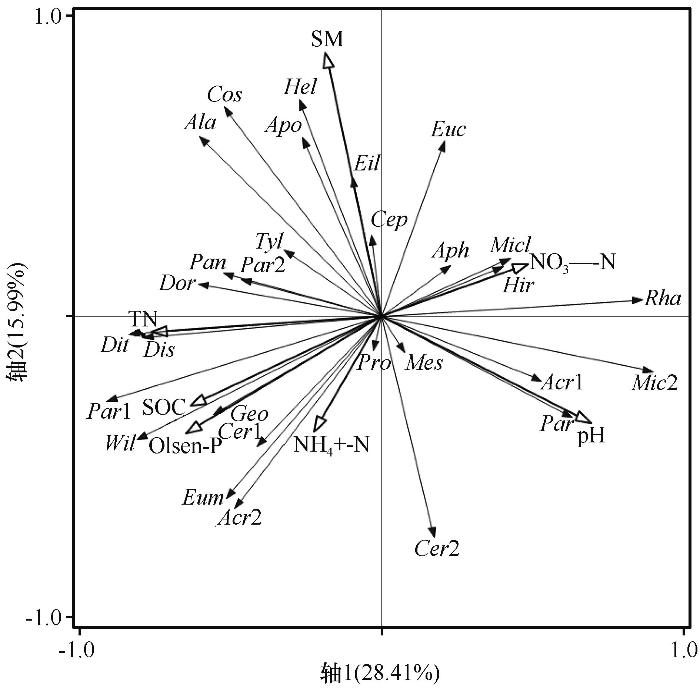
冗余分析(RDA)前两轴共解释了44.4%的变异信息,表明土壤理化性质对土壤线虫群落组成具有显著影响(图4 ),其余未被解释的变异可能主要与不同林龄阶段凋落物数量与质量的变化有关。幼龄林(S10)凋落物少、养分不足,限制线虫群落发展;中龄林(S29、S46)凋落物积累分解,提升土壤养分,促进线虫数量和多样性;成熟林(S60)凋落物输入与分解趋稳,养分释放平衡,线虫群落促进作用减弱并发生结构调整。土壤pH值、有机碳、全氮及速效磷是影响土壤群落组成的主要因子。土壤有机碳(SOC)、速效磷(Olsen-P)含量均与优势线虫鹿角唇属(Cer 2)正相关,全氮含量和土壤pH值与其表现出负相关关系。而土壤全氮含量与螺旋属正相关,土壤pH值、有机碳和速效磷含量与其负相关。
图4
图4
土壤线虫群落与土壤理化性质的冗余分析
Fig.4
Redundancy analysis (RDA) of soil nematode communities and soil physical and chemical properties
3 讨论
3.1 不同林龄樟子松固沙林对土壤线虫群落的影响
樟子松作为辽西沙地主要的人工造林树种,对区域生态恢复与土壤质量改善具有显著作用[25 ] 。土壤线虫群落组成和多样性随林龄的变化可能受植被生长状况及其上行效应的驱动[26 ] 。其中,土壤线虫的数量变化能够指示土壤养分供应及可利用资源的动态状况[27 ] ,通过分析线虫群落的结构与组成,可综合表征不同功能类群的生境特征及其食物资源状态[28 ] 。
本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值。樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] 。然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] 。安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致。这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃。植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加。这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] 。植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] 。王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致。同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险。
土壤线虫群落的多样性指数和生态功能指数能够有效指示土壤生物多样性与土壤食物网结构与功能特征,是评价土壤生态系统恢复状况的重要指标[29 ] 。总体而言,随着林龄增加,土壤线虫群落多样性提高,群落结构趋于复杂,并逐渐向稳定状态演替。随着林龄增加,线虫Margalef丰富度指数(SR )和Shannon多样性指数(H' )整体呈上升趋势,随着林分发育,植物凋落物输入及根系活动增强,促进了土壤资源提高,从而有利于线虫群落物种丰富度和多样性的提升[34 ] 。随着林龄增加至60年,线虫成熟度指数(MI )的升高以及瓦斯乐斯卡指数(WI )的下降,表明土壤食物网由富集型向结构型转变。区系分析结果显示,S60样地分布于C象限,进一步验证了土壤食物网由富集型向结构型转变的过程。但60年生林中线虫数量却有所下降,呈现出稳定性增强与数量降低此消彼长的特征。这一现象表明,随着樟子松固沙林的生长,樟子松固沙林进入成熟林阶段,养分输入趋缓、资源减少,使食细菌等机会型线虫减少,总体丰度降低[35 ] ;而杂食-捕食性线虫等高营养级类群比例上升却能完善食物网结构并提高能量传递效率[36 ] ,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征。最后,线虫通路比值(NCR )基本稳定在0.9左右,表明各林龄阶段土壤有机质分解过程均以细菌通道为主,分解速率较快。
3.2 影响土壤线虫群落的主要环境因素
本研究的相关性分析与冗余分析结果表明,土壤pH值、有机碳、全氮及速效磷是影响樟子松固沙林土壤线虫群落组成的关键环境因子。
其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致。土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致。这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加。同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] 。在中龄林阶段,这种促进作用最为明显。而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变。相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] 。全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度。这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异。本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群。
综上所述,辽西沙地樟子松固沙林随着林龄的增加,土壤pH值、土壤有机碳、全氮和速效磷对土壤线虫数量、群落组成和结构,以及生态指数特征都具有显著影响。与此同时,植被恢复对土壤线虫群落的影响,可能进一步对植被生长产生重要的反馈作用[44 ] 。当樟子松固沙林进入成熟期时,植食性线虫的数量达到峰值,这对樟子松固沙林的生长生态功能的发挥可能有着一定的抑制作用,可能引发潜在的土壤生态退化风险,应进一步强化林分中后期的经营管理与生态调控措施。
4 结论
不同林龄樟子松固沙林中,土壤线虫群落结构存在显著差异。随着樟子松固沙林龄增加,土壤线虫数量呈先升后降趋势,在46年生林达到峰值。各林龄阶段均以食细菌线虫为优势类群,表明土壤食物网以细菌分解通道为主;植食性线虫比例随林龄增加而上升,在60年生林中达到最高,反映出群落结构由以微生物途径为主逐步向多营养级结构转变。线虫群落多样性和生态指数总体随林龄增加而提高,46年生林阶段群落结构最为复杂,而60年生林中成熟度和结构指数较高,表明土壤食物网趋于稳定。土壤pH、有机碳、全氮和速效磷是驱动线虫群落结构变化的主要环境因子。总体来看,樟子松固沙林发育过程中,土壤线虫群落结构表现出由简单向复杂、再向稳定演替的特征。
参考文献
View Option
[1]
Capozzi F Palma A D Paola F D et al Assessing desertificat-ion in sub-Saharan peri-urban areas:case study applications in Burkina Faso and Senegal
[J].Journal of Geochemical Exploration ,2018 ,190 :281 -291 .
[本文引用: 1]
[2]
Ren Y Zhang B Chen X et al Analysis of spatial-temporal p-atterns and driving mechanisms of land desertification in China
[J].Science of the Total Environment ,2024 ,909 :168429 .
[本文引用: 1]
[3]
郑成卓 ,李玉强 ,王旭洋 ,等 土地荒漠化及其恢复过程土壤动物生态学研究进展
[J].生态学报 ,2025 ,45 (3 ):1059 -1069 .
[本文引用: 1]
[4]
朱教君 ,郑晓 ,闫巧玲 三北防护林工程生态环境效应遥感监测与评估研究 [M].北京 :科学出版社 ,2016 .
[本文引用: 1]
[5]
党宏忠 ,张学利 ,韩辉 ,等 樟子松固沙林林水关系研究进展及对营林实践的指导
[J].植物生态学报 ,2022 ,46 (9 ):971 -983 .
[本文引用: 1]
[6]
刘明慧 ,柳叶 ,任悦 ,等 科尔沁沙地樟子松人工林土壤真菌共现网络及其与土壤因子的关系
[J].生态学报 ,2023 ,43 (23 ):9912 -9924 .
[本文引用: 1]
[7]
张晓 ,吴梦婉 , SeMyung K 等 不同林龄樟子松人工林径向生长对气候及地下水位变化的响应
[J].生态学报 ,2022 ,42 (16 ):6827 -6837 .
[8]
周凤艳 ,张欣月 ,赵志浩 ,等 樟子松固沙林生长对土壤磷素变化的影响
[J].生态学报 ,2022 ,42 (2 ):635 -645 .
[本文引用: 1]
[9]
刘艳军 ,张喜林 ,高中超 ,等 长期施肥对哈尔滨黑土土壤线虫群落的影响
[J].土壤通报 ,2011 ,42 (5 ):1112 -1115 .
[本文引用: 1]
[10]
卢孟召 ,刘梅 ,陈光 ,等 灵芝连作对土壤理化性质及线虫群落的影响
[J].吉林农业大学学报 ,2022 ,44 (5 ):586 -594 .
[本文引用: 1]
[11]
Ferris H Bongers T de Goede R G M A framework for soil food web diagnostics:extension of the nematode faunal analysi-s concept
[J].Applied Soil Ecology ,2001 ,18 (1 ):13 -29 .
[12]
Yeates G W Nematodes as soil indicators:functional and biodi-versity aspects
[J].Biology and Fertility of Soils ,2003 ,37 (4 ):199 -210 .
[本文引用: 1]
[13]
Liu J Jia X Y Yan W M et al Changes in soil microbial co-mmunity structure during long-term secondary succession
[J].Land Degradation & Development ,2020 ,31 (9 ):1151 -1166 .
[本文引用: 1]
[14]
Bardgett R D van der Putten W H Belowground biodiversity and ecosystem functioning
[J].Nature ,2014 ,515 (7528 ):505 -511 .
[本文引用: 1]
[15]
梁文举 ,葛亭魁 ,段玉玺 土壤健康及土壤动物生物指示的研究与应用
[J].沈阳农业大学学报 ,2001 (1 ):70 -72 .
[本文引用: 1]
[16]
鲍士旦 土壤农化分析 [M].北京 :中国农业出版社 ,2000 .
[本文引用: 1]
[17]
Wu Y Chen W J Entemake W et al Long-term vegetation re-storation promotes the stability of the soil micro-food web in t-he Loess Plateau in North-west China
[J].Catena ,2021 ,202 :105293 .
[本文引用: 1]
[18]
Bongers AMT De nematoden van Nederland
.(Natuurhistorische bibliotheek van de KNNV :No .46 ).Stichting Uitgeverij Koni-nklijke Nederlandse Natuurhistorische Vereniging ,1988.
[本文引用: 1]
[19]
张晓珂 ,梁文举 ,李琪 长白山森林土壤线虫-形态分类与分布格局 [M].北京 :中国农业出版社 ,2013 .
[20]
尹文英 中国土壤动物检索图鉴 [M].北京 :科学出版社 ,1998 .
[本文引用: 1]
[21]
Yeates G W Bongers T De Goede R G et al Feeding habits in soil nematode families and genera-an outline for soil ecolog-ists
[J].Journal of Nematology ,1993 ,25 (3 ):315 -331 .
[本文引用: 1]
[22]
Bongers T The maturity index:an ecological measure of envir-onmental disturbance based on nematode species composition
[J].Oecologia ,1990 ,83 (1 ):14 -19 .
[本文引用: 1]
[23]
Bongers T Bongers M Functional diversity of nematodes
[J].Applied Soil Ecology ,1998 ,10 (3 ):239 -251 .
[本文引用: 1]
[24]
王楠 ,黄菁华 ,霍娜 ,等 黄土高原半干旱区不同林龄柠条人工林土壤线虫群落特征
[J].生态学杂志 ,2022 ,41 (2 ):236 -245 .
[本文引用: 2]
[25]
于东伟 ,雷泽勇 ,赵国军 ,等 樟子松固沙林土壤理化特性对林分密度的响应
[J].干旱区研究 ,2020 ,37 (1 ):134 -141 .
[本文引用: 1]
[26]
Zhang X K Guan P T Wang Y L et al Community composi-tion,diversity and metabolic footprints of soil nematodes in di-fferently-aged temperate forests
[J].Soil Biology and Biochemist-ry ,2015 ,80 :118 -126 .
[本文引用: 1]
[27]
Li Y J Yang G P Neher D A et al Status of soil nematode communities during natural regeneration of a subtropical forest in southwestern China
[J].Nematology ,2015 ,17 (1 ):79 -90 .
[本文引用: 1]
[28]
高飞 ,赵贺 ,周峰 ,等 江苏省不同种植年限的西/甜瓜农田土壤线虫群落特征
[J].生态学杂志 ,2020 ,39 (1 ):155 -163 .
[本文引用: 1]
[29]
张晓珂 ,梁文举 ,李琪 我国土壤线虫生态学研究进展和展望
[J].生物多样性 ,2018 ,26 (10 ):1060 -1073 .
[本文引用: 2]
[30]
梁香寒 ,张克斌 ,乔厦 ,等 半干旱黄土区柠条林土壤水分和养分与群落多样性关系
[J].生态环境学报 ,2019 ,28 (9 ):1748 -1756 .
[本文引用: 1]
[31]
安芳娇 ,苏永中 ,牛子儒 ,等 干旱区荒漠绿洲过渡带建植梭梭(Haloxylon ammodendron )林后土壤线虫群落演变
[J].中国沙漠 ,2024 ,44 (2 ):133 -142 .
[本文引用: 1]
[32]
王雪峰 ,毛之夏 ,徐济责 ,等 根际效应对大豆田土壤线虫群落组成及多样性的影响
[J].生态学报 ,2016 ,36 (16 ):5256 -5262 .
[本文引用: 1]
[33]
杜晓芳 ,李英滨 ,刘芳 ,等 土壤微食物网结构与生态功能
[J].应用生态学报 ,2018 ,29 (2 ):403 -411 .
[本文引用: 1]
[34]
韩宗育 ,雷泽勇 ,王国晨 ,等 樟子松成熟林年生长对土壤碳·氮·磷变化的影响
[J].安徽农业科学 ,2024 ,52 (2 ):105 -109 .
[本文引用: 1]
[35]
李宜浓 ,周晓梅 ,张乃莉 ,等 陆地生态系统混合凋落物分解研究进展
[J].生态学报 ,2016 ,36 (16 ):4977 -4987 .
[本文引用: 1]
[36]
Li L Luo Z Li L et al Long-term phosphorus fertilization re-veals the phosphorus limitation shaping the soil micro-food web stability in the Loess Plateau
[J].Frontiers in Microbiology ,2024 ,14 :1256269 .
[本文引用: 1]
[37]
Guan P T Zhang X K Yu J et al Soil microbial food web c-hannels associated with biological soil crusts in desertification restoration:the carbon flow from microbes to nematodes
[J].Soil Biology and Biochemistry ,2018 ,116 :82 -90 .
[本文引用: 1]
[38]
侯磊 ,任毅华 ,卢杰 ,等 雪被厚度对色季拉山急尖长苞冷杉林土壤线虫群落的影响
[J].生态学报 ,2023 ,43 (6 ):2348 -2356 .
[本文引用: 1]
[39]
贾远彬 ,徐万里 ,寇天乐 ,等 有机物料添加对风沙土土壤线虫群落和能量结构的影响
[J].生态学报 ,2026 ,46 (7 ):3429 -3438 .
[本文引用: 1]
[40]
刘萍 ,刘红文 ,张淼 ,等 典型黑土区农田土壤线虫群落的纬度分布格局及其驱动机制
[J].生物多样性 ,2022 ,30 (12 ):99 -109 .
[本文引用: 1]
[41]
程刘竹 ,朱柏菁 ,成艳红 ,等 生物质炭与化肥减量配施对红壤线虫群落特征的影响
[J].土壤学报 ,2025 ,62 (3 ):836 -846 .
[本文引用: 1]
[42]
吕莹 线虫群落对大连滨海石油与土壤重金属污染及绿地生态系统恢复的指示作用研究
[D].大连 :辽宁师范大学 ,2012 .
[本文引用: 1]
[43]
张勇群 ,毛庆功 ,王聪 ,等 氮沉降对土壤线虫群落影响的研究进展
[J].热带亚热带植物学报 ,2020 , 28 (1 ):105 -114 .
[本文引用: 1]
[44]
Kardol P Cornips N J van Kempen M M L et al Microbe-m-ediated plant-soil feedback causes historical contingency effects in plant community assembly
[J].Ecological Monographs ,2007 ,77 (2 ):147 -162 .
[本文引用: 1]
Assessing desertificat-ion in sub-Saharan peri-urban areas:case study applications in Burkina Faso and Senegal
1
2018
... 土地荒漠化已成为全球性突出的生态环境问题,既严重威胁生物多样性的维持与生态系统功能的稳定,还对人类社会的生产活动和生活安全造成显著影响[1 ] .辽宁省西部地区自然植被覆盖度低,土地沙化现象严重,是辽宁省沙化土地的主要分布区域.沙化过程往往伴随着植被退化、土壤结构破坏及养分流失,进而导致土壤生物栖息环境恶化、生物类群减少以及地下食物网结构简化,对区域生物多样性及生态系统功能产生持续负面影响[2 ] .在此背景下,人工造林被广泛认为是防治土地荒漠化、恢复生态系统结构与功能的关键措施[3 ] .自1978年实施的“三北”防护林体系建设工程,在防治水土流失、抑制风蚀与沙化进程等方面发挥了重要作用[4 ] ,也有效遏制并改善了辽西地区的土地沙化问题,促进了区域生态环境的整体恢复与可持续发展.因此,系统开展辽西沙地人工固沙林土壤生物多样性特征及生态系统恢复状况研究,并综合评估其生态环境效应,对于揭示该地区人工植被恢复过程中的生态响应特征及指导可持续管理具有重要意义. ...
Analysis of spatial-temporal p-atterns and driving mechanisms of land desertification in China
1
2024
... 土地荒漠化已成为全球性突出的生态环境问题,既严重威胁生物多样性的维持与生态系统功能的稳定,还对人类社会的生产活动和生活安全造成显著影响[1 ] .辽宁省西部地区自然植被覆盖度低,土地沙化现象严重,是辽宁省沙化土地的主要分布区域.沙化过程往往伴随着植被退化、土壤结构破坏及养分流失,进而导致土壤生物栖息环境恶化、生物类群减少以及地下食物网结构简化,对区域生物多样性及生态系统功能产生持续负面影响[2 ] .在此背景下,人工造林被广泛认为是防治土地荒漠化、恢复生态系统结构与功能的关键措施[3 ] .自1978年实施的“三北”防护林体系建设工程,在防治水土流失、抑制风蚀与沙化进程等方面发挥了重要作用[4 ] ,也有效遏制并改善了辽西地区的土地沙化问题,促进了区域生态环境的整体恢复与可持续发展.因此,系统开展辽西沙地人工固沙林土壤生物多样性特征及生态系统恢复状况研究,并综合评估其生态环境效应,对于揭示该地区人工植被恢复过程中的生态响应特征及指导可持续管理具有重要意义. ...
土地荒漠化及其恢复过程土壤动物生态学研究进展
1
2025
... 土地荒漠化已成为全球性突出的生态环境问题,既严重威胁生物多样性的维持与生态系统功能的稳定,还对人类社会的生产活动和生活安全造成显著影响[1 ] .辽宁省西部地区自然植被覆盖度低,土地沙化现象严重,是辽宁省沙化土地的主要分布区域.沙化过程往往伴随着植被退化、土壤结构破坏及养分流失,进而导致土壤生物栖息环境恶化、生物类群减少以及地下食物网结构简化,对区域生物多样性及生态系统功能产生持续负面影响[2 ] .在此背景下,人工造林被广泛认为是防治土地荒漠化、恢复生态系统结构与功能的关键措施[3 ] .自1978年实施的“三北”防护林体系建设工程,在防治水土流失、抑制风蚀与沙化进程等方面发挥了重要作用[4 ] ,也有效遏制并改善了辽西地区的土地沙化问题,促进了区域生态环境的整体恢复与可持续发展.因此,系统开展辽西沙地人工固沙林土壤生物多样性特征及生态系统恢复状况研究,并综合评估其生态环境效应,对于揭示该地区人工植被恢复过程中的生态响应特征及指导可持续管理具有重要意义. ...
1
2016
... 土地荒漠化已成为全球性突出的生态环境问题,既严重威胁生物多样性的维持与生态系统功能的稳定,还对人类社会的生产活动和生活安全造成显著影响[1 ] .辽宁省西部地区自然植被覆盖度低,土地沙化现象严重,是辽宁省沙化土地的主要分布区域.沙化过程往往伴随着植被退化、土壤结构破坏及养分流失,进而导致土壤生物栖息环境恶化、生物类群减少以及地下食物网结构简化,对区域生物多样性及生态系统功能产生持续负面影响[2 ] .在此背景下,人工造林被广泛认为是防治土地荒漠化、恢复生态系统结构与功能的关键措施[3 ] .自1978年实施的“三北”防护林体系建设工程,在防治水土流失、抑制风蚀与沙化进程等方面发挥了重要作用[4 ] ,也有效遏制并改善了辽西地区的土地沙化问题,促进了区域生态环境的整体恢复与可持续发展.因此,系统开展辽西沙地人工固沙林土壤生物多样性特征及生态系统恢复状况研究,并综合评估其生态环境效应,对于揭示该地区人工植被恢复过程中的生态响应特征及指导可持续管理具有重要意义. ...
樟子松固沙林林水关系研究进展及对营林实践的指导
1
2022
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
科尔沁沙地樟子松人工林土壤真菌共现网络及其与土壤因子的关系
1
2023
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
不同林龄樟子松人工林径向生长对气候及地下水位变化的响应
0
2022
樟子松固沙林生长对土壤磷素变化的影响
1
2022
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
长期施肥对哈尔滨黑土土壤线虫群落的影响
1
2011
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
灵芝连作对土壤理化性质及线虫群落的影响
1
2022
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
A framework for soil food web diagnostics:extension of the nematode faunal analysi-s concept
0
2001
Nematodes as soil indicators:functional and biodi-versity aspects
1
2003
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
Changes in soil microbial co-mmunity structure during long-term secondary succession
1
2020
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
Belowground biodiversity and ecosystem functioning
1
2014
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
土壤健康及土壤动物生物指示的研究与应用
1
2001
... 樟子松(Pinus sylvestris var. mongolica )具有耐旱、耐寒及耐贫瘠等特性,生态适应性强,是“三北”防护林体系建设工程中应用最广泛且最具代表性的常绿针叶造林树种,在防治土地风蚀、改善区域生态质量及促进农牧业可持续发展过程中具有关键作用[5 ] .樟子松固沙林在生态环境方面具有多重影响,其种植与生长不仅会作用于林下草本植物群落,还会对土壤性质及微生物群落组成和多样性产生显著影响[6 -8 ] .然而,关于樟子松固沙林的种植和生长对土壤线虫群落影响的研究较少.土壤线虫具备高度多样性、丰富数量及广域分布特征,在土壤生态系统中具有重要作用[9 ] .相较于传统的化学或微生物指标,土壤线虫具有生命周期短、对环境变化反应灵敏以及营养层次明确等优势[10 -12 ] .在生态恢复过程中,随着植物不断生长,其根系活动、根际物质释放以及地表凋落物归还会改变土壤中的养分条件与生境特征,从而进一步影响地下生物群落的结构和多样性[13 ] .土壤线虫作为敏感的生物指示类群,能够有效表征土壤生物多样性特征,并反映土壤食物网结构与生态功能的动态变化,已被广泛应用于生态系统健康状况的评估[14 -15 ] . ...
1
2000
... 采用烘干法测定土壤含水量(SM),电位法测定土壤pH,重铬酸钾外加热法测定土壤有机碳(SOC),凯氏定氮法测定全氮(TN),碳酸氢钠浸提-钼锑抗比色法测定速效磷(Olsen-P),2 mol·L-1 KCl 溶液浸提法测定硝态氮(NO3 - - N)和铵态氮(NH4 + - N)[16 ] ,各样地土壤理化性质结果见表1 . ...
Long-term vegetation re-storation promotes the stability of the soil micro-food web in t-he Loess Plateau in North-west China
1
2021
... 采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] .线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度.每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定.根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] . ...
De nematoden van Nederland
1
46
... 采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] .线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度.每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定.根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] . ...
1
1998
... 采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] .线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度.每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定.根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] . ...
Feeding habits in soil nematode families and genera-an outline for soil ecolog-ists
1
1993
... 采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] .线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度.每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定.根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] . ...
The maturity index:an ecological measure of envir-onmental disturbance based on nematode species composition
1
1990
... 采用改良的贝尔曼(Baermann)漏斗法从100 g新鲜土壤样品中提取线虫[17 ] .线虫提取后经60 ℃温水浴杀死,保存在4%甲醛溶液后转移至载玻片,采用光学显微镜(Olympus BX51)观察和计数,并换算成每100 g干土的数量代表线虫丰度.每个样品随机选取100条线虫鉴定至属[18 -20 ] ,不足100条全部鉴定.根据摄食习性分为食细菌线虫(BF)、食真菌线虫(FF)、杂食-捕食性线虫(OP)和植食性线虫(PP)4个营养类群[21 ] ,采用各营养类群的相对丰度解释群落组成;根据生活史策略划分c-p(colonizer-persister)值为1~5的5个类群[22 ] . ...
Functional diversity of nematodes
1
1998
... 线虫生态功能指数:成熟度指数(MI )、植物寄生线虫指数(PPI )、线虫通路比值(NCR )、瓦斯乐斯卡指数(WI )、富集指数(EI )和结构指数(SI )[23 -24 ] . ...
黄土高原半干旱区不同林龄柠条人工林土壤线虫群落特征
2
2022
... 线虫生态功能指数:成熟度指数(MI )、植物寄生线虫指数(PPI )、线虫通路比值(NCR )、瓦斯乐斯卡指数(WI )、富集指数(EI )和结构指数(SI )[23 -24 ] . ...
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
樟子松固沙林土壤理化特性对林分密度的响应
1
2020
... 樟子松作为辽西沙地主要的人工造林树种,对区域生态恢复与土壤质量改善具有显著作用[25 ] .土壤线虫群落组成和多样性随林龄的变化可能受植被生长状况及其上行效应的驱动[26 ] .其中,土壤线虫的数量变化能够指示土壤养分供应及可利用资源的动态状况[27 ] ,通过分析线虫群落的结构与组成,可综合表征不同功能类群的生境特征及其食物资源状态[28 ] . ...
Community composi-tion,diversity and metabolic footprints of soil nematodes in di-fferently-aged temperate forests
1
2015
... 樟子松作为辽西沙地主要的人工造林树种,对区域生态恢复与土壤质量改善具有显著作用[25 ] .土壤线虫群落组成和多样性随林龄的变化可能受植被生长状况及其上行效应的驱动[26 ] .其中,土壤线虫的数量变化能够指示土壤养分供应及可利用资源的动态状况[27 ] ,通过分析线虫群落的结构与组成,可综合表征不同功能类群的生境特征及其食物资源状态[28 ] . ...
Status of soil nematode communities during natural regeneration of a subtropical forest in southwestern China
1
2015
... 樟子松作为辽西沙地主要的人工造林树种,对区域生态恢复与土壤质量改善具有显著作用[25 ] .土壤线虫群落组成和多样性随林龄的变化可能受植被生长状况及其上行效应的驱动[26 ] .其中,土壤线虫的数量变化能够指示土壤养分供应及可利用资源的动态状况[27 ] ,通过分析线虫群落的结构与组成,可综合表征不同功能类群的生境特征及其食物资源状态[28 ] . ...
江苏省不同种植年限的西/甜瓜农田土壤线虫群落特征
1
2020
... 樟子松作为辽西沙地主要的人工造林树种,对区域生态恢复与土壤质量改善具有显著作用[25 ] .土壤线虫群落组成和多样性随林龄的变化可能受植被生长状况及其上行效应的驱动[26 ] .其中,土壤线虫的数量变化能够指示土壤养分供应及可利用资源的动态状况[27 ] ,通过分析线虫群落的结构与组成,可综合表征不同功能类群的生境特征及其食物资源状态[28 ] . ...
我国土壤线虫生态学研究进展和展望
2
2018
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
... 土壤线虫群落的多样性指数和生态功能指数能够有效指示土壤生物多样性与土壤食物网结构与功能特征,是评价土壤生态系统恢复状况的重要指标[29 ] .总体而言,随着林龄增加,土壤线虫群落多样性提高,群落结构趋于复杂,并逐渐向稳定状态演替.随着林龄增加,线虫Margalef丰富度指数(SR )和Shannon多样性指数(H' )整体呈上升趋势,随着林分发育,植物凋落物输入及根系活动增强,促进了土壤资源提高,从而有利于线虫群落物种丰富度和多样性的提升[34 ] .随着林龄增加至60年,线虫成熟度指数(MI )的升高以及瓦斯乐斯卡指数(WI )的下降,表明土壤食物网由富集型向结构型转变.区系分析结果显示,S60样地分布于C象限,进一步验证了土壤食物网由富集型向结构型转变的过程.但60年生林中线虫数量却有所下降,呈现出稳定性增强与数量降低此消彼长的特征.这一现象表明,随着樟子松固沙林的生长,樟子松固沙林进入成熟林阶段,养分输入趋缓、资源减少,使食细菌等机会型线虫减少,总体丰度降低[35 ] ;而杂食-捕食性线虫等高营养级类群比例上升却能完善食物网结构并提高能量传递效率[36 ] ,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征.最后,线虫通路比值(NCR )基本稳定在0.9左右,表明各林龄阶段土壤有机质分解过程均以细菌通道为主,分解速率较快. ...
半干旱黄土区柠条林土壤水分和养分与群落多样性关系
1
2019
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
干旱区荒漠绿洲过渡带建植梭梭(Haloxylon ammodendron )林后土壤线虫群落演变
1
2024
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
根际效应对大豆田土壤线虫群落组成及多样性的影响
1
2016
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
土壤微食物网结构与生态功能
1
2018
... 本研究结果显示,不同林龄樟子松林的线虫数量呈现先升高后降低的趋势,在46年生林达到峰值.樟子松幼龄林期(S10),地表植被稀疏,线虫数量较低;随着林龄增加,土壤养分逐步积累,微生物活性增强,为食细菌线虫和食真菌线虫提供了丰富的食物资源,使线虫数量显著上升[29 ] .然而,当樟子松达到成熟林阶段(S60)时,土壤环境趋于稳定,养分输入速度下降,导致线虫总数下降[30 ] .安芳娇等[31 ] 对干旱区荒漠绿洲过渡带建植梭梭林后土壤线虫群落演变的研究结果表明,梭梭生长显著提高土壤线虫总数,随梭梭种植年限增加先稳定后逐渐退化,这与本文的研究结果一致.这说明成熟林阶段是土壤生物活性与生态系统代谢最为旺盛的时期,土壤微生物分解活动最为活跃.植食性线虫比例随着樟子松林龄的增长显著升高,在60年生林达到峰值,如螺旋属为代表的植食性线虫在60年生林中显著增加.这表明随着樟子松生长及根系不断扩展,根际碳源输入和细根生物量增加,可为植食性线虫提供了充足的食物资源[32 ] .植食性线虫通过取食植物根系,可引起根组织损伤和吸收功能下降,其持续积累可能对老龄樟子松产生负反馈作用[33 ] .王楠等[24 ] 关于黄土高原半干旱区不同林龄柠条人工林的研究结果表明,在高林龄阶段的柠条人工林中,植食线虫的数量急剧增加,对柠条人工林的生长和生态功能的发挥可能有着一定的抑制作用,这与本文研究结果一致.同时,植物寄生线虫指数(PPI )随林龄增长而不断升高,瓦斯乐斯卡指数(WI )在樟子松达到成熟林阶段(S60)时降至最低,表明该阶段虽然结构上趋于稳定,但植食性线虫的优势度和潜在危害越大,其生态功能可能出现一定程度的退化风险. ...
樟子松成熟林年生长对土壤碳·氮·磷变化的影响
1
2024
... 土壤线虫群落的多样性指数和生态功能指数能够有效指示土壤生物多样性与土壤食物网结构与功能特征,是评价土壤生态系统恢复状况的重要指标[29 ] .总体而言,随着林龄增加,土壤线虫群落多样性提高,群落结构趋于复杂,并逐渐向稳定状态演替.随着林龄增加,线虫Margalef丰富度指数(SR )和Shannon多样性指数(H' )整体呈上升趋势,随着林分发育,植物凋落物输入及根系活动增强,促进了土壤资源提高,从而有利于线虫群落物种丰富度和多样性的提升[34 ] .随着林龄增加至60年,线虫成熟度指数(MI )的升高以及瓦斯乐斯卡指数(WI )的下降,表明土壤食物网由富集型向结构型转变.区系分析结果显示,S60样地分布于C象限,进一步验证了土壤食物网由富集型向结构型转变的过程.但60年生林中线虫数量却有所下降,呈现出稳定性增强与数量降低此消彼长的特征.这一现象表明,随着樟子松固沙林的生长,樟子松固沙林进入成熟林阶段,养分输入趋缓、资源减少,使食细菌等机会型线虫减少,总体丰度降低[35 ] ;而杂食-捕食性线虫等高营养级类群比例上升却能完善食物网结构并提高能量传递效率[36 ] ,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征.最后,线虫通路比值(NCR )基本稳定在0.9左右,表明各林龄阶段土壤有机质分解过程均以细菌通道为主,分解速率较快. ...
陆地生态系统混合凋落物分解研究进展
1
2016
... 土壤线虫群落的多样性指数和生态功能指数能够有效指示土壤生物多样性与土壤食物网结构与功能特征,是评价土壤生态系统恢复状况的重要指标[29 ] .总体而言,随着林龄增加,土壤线虫群落多样性提高,群落结构趋于复杂,并逐渐向稳定状态演替.随着林龄增加,线虫Margalef丰富度指数(SR )和Shannon多样性指数(H' )整体呈上升趋势,随着林分发育,植物凋落物输入及根系活动增强,促进了土壤资源提高,从而有利于线虫群落物种丰富度和多样性的提升[34 ] .随着林龄增加至60年,线虫成熟度指数(MI )的升高以及瓦斯乐斯卡指数(WI )的下降,表明土壤食物网由富集型向结构型转变.区系分析结果显示,S60样地分布于C象限,进一步验证了土壤食物网由富集型向结构型转变的过程.但60年生林中线虫数量却有所下降,呈现出稳定性增强与数量降低此消彼长的特征.这一现象表明,随着樟子松固沙林的生长,樟子松固沙林进入成熟林阶段,养分输入趋缓、资源减少,使食细菌等机会型线虫减少,总体丰度降低[35 ] ;而杂食-捕食性线虫等高营养级类群比例上升却能完善食物网结构并提高能量传递效率[36 ] ,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征.最后,线虫通路比值(NCR )基本稳定在0.9左右,表明各林龄阶段土壤有机质分解过程均以细菌通道为主,分解速率较快. ...
Long-term phosphorus fertilization re-veals the phosphorus limitation shaping the soil micro-food web stability in the Loess Plateau
1
2024
... 土壤线虫群落的多样性指数和生态功能指数能够有效指示土壤生物多样性与土壤食物网结构与功能特征,是评价土壤生态系统恢复状况的重要指标[29 ] .总体而言,随着林龄增加,土壤线虫群落多样性提高,群落结构趋于复杂,并逐渐向稳定状态演替.随着林龄增加,线虫Margalef丰富度指数(SR )和Shannon多样性指数(H' )整体呈上升趋势,随着林分发育,植物凋落物输入及根系活动增强,促进了土壤资源提高,从而有利于线虫群落物种丰富度和多样性的提升[34 ] .随着林龄增加至60年,线虫成熟度指数(MI )的升高以及瓦斯乐斯卡指数(WI )的下降,表明土壤食物网由富集型向结构型转变.区系分析结果显示,S60样地分布于C象限,进一步验证了土壤食物网由富集型向结构型转变的过程.但60年生林中线虫数量却有所下降,呈现出稳定性增强与数量降低此消彼长的特征.这一现象表明,随着樟子松固沙林的生长,樟子松固沙林进入成熟林阶段,养分输入趋缓、资源减少,使食细菌等机会型线虫减少,总体丰度降低[35 ] ;而杂食-捕食性线虫等高营养级类群比例上升却能完善食物网结构并提高能量传递效率[36 ] ,从而使土壤生态系统表现出由养分积累向结构稳定化过渡的趋势特征.最后,线虫通路比值(NCR )基本稳定在0.9左右,表明各林龄阶段土壤有机质分解过程均以细菌通道为主,分解速率较快. ...
Soil microbial food web c-hannels associated with biological soil crusts in desertification restoration:the carbon flow from microbes to nematodes
1
2018
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
雪被厚度对色季拉山急尖长苞冷杉林土壤线虫群落的影响
1
2023
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
有机物料添加对风沙土土壤线虫群落和能量结构的影响
1
2026
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
典型黑土区农田土壤线虫群落的纬度分布格局及其驱动机制
1
2022
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
生物质炭与化肥减量配施对红壤线虫群落特征的影响
1
2025
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
线虫群落对大连滨海石油与土壤重金属污染及绿地生态系统恢复的指示作用研究
1
2012
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
氮沉降对土壤线虫群落影响的研究进展
1
2020
... 其中,有机碳与全氮是主导线虫数量与多样性变化的核心变量[37 ] ,侯磊等[38 ] 关于雪被厚度对色季拉山急尖长苞冷杉林的研究结果表明,土壤有机质、全氮是影响土壤线虫群落的主要环境因子,与本文研究结果一致.土壤有机碳与线虫数量显著正相关,贾远彬等[39 ] 关于有机物料添加对风沙土土壤线虫群落的影响研究结果表明,有机物料添加显著增加了线虫的丰度,这与本研究结果一致.这表明碳源供给在决定线虫群落丰度方面具有重要作用[40 ] ,中龄林阶段(S46)凋落物归还和根系分泌作用增强,促进有机碳积累,提高微生物活性,从而带动食细菌线虫数量增加.同时,有机碳含量与食细菌线虫(BF)和植食性线虫(PP)数量均呈正相关,说明碳源增加不仅直接促进低营养级线虫繁殖,还可通过增强植物生物量和根际过程间接促进植食性线虫发展[41 ] .在中龄林阶段,这种促进作用最为明显.而在高林龄阶段(60年生林),有机碳积累趋于稳定,资源输入减缓,使其对线虫总数量的促进作用减弱,但根系老化可能为植食性线虫提供有利条件,从而推动群落结构向植食性线虫占比增加转变.相较之下,食真菌线虫比例与土壤pH值显著负相关,反映出偏酸性环境有利于真菌通道活化,益于食真菌线虫的生长[42 ] .全氮(TN)与Margalef丰富度指数(SR )呈极显著正相关,显示氮素积累显著提高线虫群落物种丰富度.这与张勇群等[43 ] 关于氮沉降对土壤线虫群落影响的研究结果相反,其原因可能在于氮输入方式的差异.本研究中氮素主要来源于植被凋落物归还和土壤内部循环,属于缓慢积累过程,有利于促进微生物多样性及食物资源多样化,从而提高线虫物种丰富度;而氮沉降通常表现为外源氮的快速输入,可能导致土壤酸化或养分失衡,从而抑制部分线虫类群. ...
Microbe-m-ediated plant-soil feedback causes historical contingency effects in plant community assembly
1
2007
... 综上所述,辽西沙地樟子松固沙林随着林龄的增加,土壤pH值、土壤有机碳、全氮和速效磷对土壤线虫数量、群落组成和结构,以及生态指数特征都具有显著影响.与此同时,植被恢复对土壤线虫群落的影响,可能进一步对植被生长产生重要的反馈作用[44 ] .当樟子松固沙林进入成熟期时,植食性线虫的数量达到峰值,这对樟子松固沙林的生长生态功能的发挥可能有着一定的抑制作用,可能引发潜在的土壤生态退化风险,应进一步强化林分中后期的经营管理与生态调控措施. ...



 甘公网安备 62010202000688号


